


Fotobiologie en biotechnologie: gecontroleerde optische bestraling van cellen en weefsel
Fotobiologie onderzoekt hoe optische straling – van UV-C tot het nabij-infrarood – interageert met biologisch materiaal: met DNA, eiwitten, fotosensibilisatoren, fotoreceptoren en celstructuren. Biotechnologie zet deze kennis doelgericht in als instrument – om micro-organismen te inactiveren, cellulaire signaalroutes te sturen, fotodynamische behandeling van weefsel uit te voeren of de lichtgemedieerde modificatie van biomoleculen aan te drijven. De centrale technische uitdaging is dat biologische systemen niet reageren op het elektrische lampvermogen of een algemene blootstellingstijd, maar op de spectrale bestralingssterkte die daadwerkelijk op de werkingsplaats aankomt, de daaruit resulterende dosis en de golflengteafhankelijke effectiviteit van individuele fotonen. Zonder herleidbare optische meting blijft elke biologische waarneming slechts beperkt reproduceerbaar.

Hoe ontwikkelt de technologie zich?
Technisch gezien is de belangrijkste verschuiving een verandering in de gebruikte lichtbronnen: van breedbandige kwikdamplampen naar smalbandige UV-LED's en excimerbronnen. Deze verschuiving verhoogt de lat voor fotobiologische karakterisering, omdat elke nieuwe golflengtecombinatie een eigen actiespectrum, een eigen veiligheidsprofiel volgens IEC 62471 en een eigen dosimetrie vereist. De toenemende regelgevende aandacht – bijvoorbeeld de updates van 2022 en 2023 van IEC 62471-6 voor UV-lampproducten en IEC 62471-7 voor zichtbare straling – is een direct gevolg van deze toename van brontypen.
De verschuiving van kwiklampen naar UV-LED's verandert niet alleen kosten en efficiëntie, maar ook de beschikbare methoden: omdat LED-arrays meerdere golflengten gelijktijdig en onafhankelijk regelbaar leveren, kunnen actiespectra nu direct en experimenteel worden bepaald door de excitatiegolflengte te variëren, in plaats van te vertrouwen op een handvol vaste lampenlijnen. De opkomst van far-UVC-bronnen rond 222 nm ontsluit toepassingen die verder gaan dan klassieke desinfectie (zie UV-desinfectie), omdat hun geringe penetratie in weefsel en hun onderscheidende fotochemie – zoals blijkt uit aanmerkelijk hogere kwantumopbrengsten voor de fotolyse van bepaalde klassen biomolecuulen – nieuwe veiligheidsprofielen en werkingsmechanismen mogelijk maken (Jing et al., 2024, Water Research). Op regelgevend vlak stuurt het Verdrag van Minamata de wereldwijde uitfasering van kwikbevattende lampen voor algemene verlichting tegen 2027; gespecialiseerde UV-bronnen voor onderzoek en desinfectie worden tot nu toe via afzonderlijke uitzonderingen behandeld, maar staan ook onder toenemende druk om zich aan te passen (Minamata Convention on Mercury – Exemptions). Tegelijkertijd hebben IEC en CIE hun veiligheidsnormen voor lampen en lampsystemen geactualiseerd – IEC 62471-6:2022 voor UV-lampproducten inclusief UV-LED's, en IEC 62471-7:2023 voor bronnen die voornamelijk zichtbaar licht uitstralen – waardoor de fotobiologische risicoclassificatie van nieuwe LED- en laserbronnen steeds bindender wordt (IEC Webstore).
Marktomvang, groeicijfers en bronnen voor dit toepassingsgebied zijn samengevat op de pagina Marktontwikkeling van UV-technologie.
Hoe werkt optische straling in op biologische systemen?
Biologische effecten ontstaan door de absorptie van fotonen door specifieke moleculen, de chromoforen: nucleïnezuren absorberen bij voorkeur in het UV-C- en UV-B-gebied, aromatische aminozuren en flavinen in het UV-A- en blauwe gebied, porfyrinen en andere fotosensibilisatoren vaak in het blauwe en rode zichtbare gebied. Wanneer een foton met geschikte energie een chromofoor raakt, kan het een elektronische overgang op gang brengen die een fotochemische reactie start – bijvoorbeeld DNA-schade, de vorming van singletzuurstof of een conformatieverandering in een fotoreceptoreiwit. De waarschijnlijkheid van die omzetting wordt beschreven door de kwantumopbrengst. Omdat absorptiespectra golflengteafhankelijk zijn, wordt de fotobiologische effectiviteit van een bron niet bepaald door het totale vermogen, maar door het product van de spectrale bestralingssterkte en een golflengteafhankelijk actiespectrum dat de relatieve efficiëntie van elke golflengte voor een bepaald biologisch eindpunt aangeeft (BIPM SI Brochure, Appendix 3).
Welke technologieën en lichtbronnen worden gebruikt?
Voor de gecontroleerde bestraling van biologische monsters is een breed scala aan bronntechnologieën beschikbaar, die verschillen in bandbreedte, golflengtebereik, thermische belasting van het monster en verouderingsgedrag.
Kwikdamplampen met lage druk zenden bijna monochromatisch licht uit bij 253,7 nm en worden traditioneel gebruikt voor UV-C-toepassingen in de microbiologie en desinfectie. Kwikdamplampen met gemiddelde en hoge druk leveren een breedbandig lijnspectrum van UV-B tot zichtbaar licht en dienen onder andere als goedkope bron voor fotostabiliteitstests. Xenon-boogontladingslampen simuleren zonlicht (D65/ID65) met een gefilterd, continu spectrum en zijn de referentiebron bij farmaceutische fotostabiliteitstests volgens ICH Q1B. Excimeerlampen, bijvoorbeeld op basis van kryptonchloride, zenden quasi-monochromatisch licht uit – bijvoorbeeld bij 222 nm – en winnen aan relevantie buiten de zuivere desinfectie door hun geringere indringdiepte in huid en ogen en hun specifieke fotochemie (Ma et al., 2023). UV- en zichtbaar-licht-LED's zijn smalbandig, schakelen bijna direct, bevatten geen kwik en kunnen worden gecombineerd tot arrays die meerdere golflengten omvatten, wat het rechtstreeks opnemen van actiespectra sterk vereenvoudigt. Lasers en laserdiodes leveren een hoge vermogensdichtheid op een zeer klein oppervlak en worden vooral gebruikt waar licht via glasvezel naar een gedefinieerde locatie moet worden geleid, zoals in de optogenetica of gerichte fotodynamische behandeling.
| Technologie | Kenmerken | Voordelen / beperkingen | Typische toepassing |
|---|---|---|---|
| Kwikdamplamp met lage druk | quasi-monochromatisch, ca. 254 nm | Hoge UV-C-efficiëntie, goed ingeburgerd, lage kosten. Kwikgehalte, veroudering, trage ontsteking | Microbiologische inactivering |
| Kwikdamplamp met gemiddelde/hoge druk | breedbandig lijnspectrum, UV-B tot zichtbaar | Hoog totaalvermogen. Sterke warmteontwikkeling, moeilijk te filteren | Fotostabiliteitstests, UV-uitharding |
| Xenon-boogontladingslamp (gefilterd) | continu, daglichtachtig spectrum | Reproduceerbaar referentiespectrum (D65/ID65). Kalibratie-inspanning, hoge warmtebelasting | Fotostabiliteitstests, zonnebrandonderzoek |
| Excimeerlamp (bijv. KrCl*, 222 nm) | quasi-monochromatisch, kortgolvig | Geringe indringing in weefsel, kwikvrij. Beperkte vermogensdichtheid, gespecialiseerde optiek vereist | Far-UVC-onderzoek, inactivering nabij het oppervlak |
| UV-/zichtbaar-licht-LED | smalbandig, meerdere golflengten combineerbaar | Lage thermische belasting, snel schakelen, lange levensduur. Lager vermogen per eenheid dan ontladingslampen | Bepaling van actiespectra, PDT, optogenetica |
| Laser / laserdiode | monochromatisch, hoge vermogensdichtheid, glasvezelkoppelbaar | Nauwkeurige focussering, gerichte lichtoverdracht. Hoge kosten, extra veiligheidsmaatregelen | Optogenetica, gerichte PDT |
Welke procesgrootheden zijn doorslaggevend?
Het foto-biologische effect van een bestraling wordt niet bepaald door een enkele grootheid, maar door de wisselwerking van verschillende fysische grootheden die afzonderlijk moeten worden geregistreerd.
Bestralingssterkte (in W/m² of mW/cm²) beschrijft het stralingsvermogen dat op een oppervlak valt en bepaalt hoe snel een dosis wordt bereikt. Dosis, of stralingsexpositie (in J/m² of mJ/cm²), is de tijdintegraal van de bestralingssterkte en is de grootheid die meestal wordt gecorreleerd met een biologisch effect zoals een log-reductie of een erytheem. Spectrale bestralingssterkte (W/(m²·nm)) is de basisgrootheid wanneer meerdere golflengten moeten worden vergeleken, gecombineerd of gewogen met een actiespectrum – elke gewenste gewogen grootheid kan hieruit worden afgeleid, maar niet omgekeerd. Effectieve, met het actiespectrum gewogen bestralingssterkte houdt rekening met het feit dat niet elke watt optisch vermogen even effectief is; alleen het aandeel dat door het relevante actiespectrum wordt gewogen, telt mee. Fotonenflux (fotonen per seconde en oppervlakte, vaak opgegeven als µmol·m⁻²·s⁻¹) is van belang in de fotobiotechnologie, omdat fotochemische reacties uiteindelijk fotonengelimiteerd zijn, niet energiegelimiteerd. Bestralingstijd en monstertemperatuur moeten onafhankelijk van elkaar worden geregistreerd, aangezien thermische effecten fotochemische effecten kunnen overlappen zonder dat dit alleen uit de dosis blijkt.
Wat beperkt het proces of veroorzaakt fouten?
Een veelvoorkomende fout is het gelijkstellen van het elektrische lampvermogen met de optische dosis ter plaatse van de werking. Tussen de lamp en de doelstructuur liggen afstand, optiek, eventueel een filter, de vaatwand, een deksel, het kweekmedium en – bij een hoge celdichtheid – de cellen zelf; elk van deze lagen verzwakt de straling op een golflengteafhankelijke manier. Een meting boven het monstervaatje beschrijft daarom de bron, niet de werkelijke blootstelling van de cellaag.
Even veelvoorkomend is de aanname dat het vermelden van alleen een tijd voldoende documentatie is. Volgens de wet van Bunsen-Roscoe (reciprociteitswet) is het product van bestralingssterkte en tijd constant voor puur fotochemische processen; voor biologische systemen geldt deze reciprociteit echter alleen binnen een beperkt intensiteits- en tijdvenster. Herstelmechanismen, zuurstoftoevoer en massatransport verlopen op hun eigen tijdschalen, zodat dezelfde dosis toegediend bij hoge bestralingssterkte over korte tijd een ander resultaat kan opleveren dan dezelfde dosis bij lage bestralingssterkte over lange tijd (overzicht van reciprociteitsfalen in de fotobiologie; studie over de grenzen van fotobiologische reciprociteit). Wie reeksen experimenten vergelijkt, dient bestralingssterkte, tijd en dosis daarom afzonderlijk te vermelden, in plaats van een kortere blootstelling bij hogere intensiteit als een neutrale omrekening te beschouwen.
Een derde, vaak onderschat punt is het verwarren van literatuurdoses met direct overdraagbare procesparameters: een inactivatiedosis van bijvoorbeeld 10 mJ/cm² die gerapporteerd wordt voor een bepaalde 222 nm excimerbron (Ma et al., 2023) geldt voor de daar beschreven meetgeometrie en matrix – het overdragen ervan naar een andere monsterdikte, een troebel medium of een andere golflengte is niet toegestaan zonder een nieuwe meting. Tot slot wordt vaak onderschat dat thermische en fotochemische effecten kunnen overlappen: een breedbandige bron met hoog vermogen verwarmt het monster meetbaar, en een puur thermisch geïnduceerde reactie kan alleen van het fotochemische effect worden onderscheiden als beide effecten afzonderlijk worden vastgelegd (Höhn et al., 2015).
Welke invloed hebben vaatmateriaal, kweekmedium en geometrie?
De spectrale transmissie van monstervaten is sterk golflengteafhankelijk en in de praktijk een van de grootste, maar minst gedocumenteerde foutenbronnen. Standaard deksels en platen van polystyreen kunnen UV-C- en UV-B-straling met verscheidene ordes van grootte sterker verzwakken dan UV-A of zichtbaar licht, waardoor een experiment dat eenvoudigweg als "UV-bestraling" wordt gedocumenteerd, in werkelijkheid heel verschillende monsterdoses kan hebben afgeleverd, afhankelijk van het gebruikte vat. Kweekmedia zelf bevatten UV- en blauwabsorberende componenten – fenolrood als pH-indicator, of riboflavine, bijvoorbeeld – die, volgens de wet van Beer-Lambert, de bestralingssterkte exponentieel verzwakken met toenemende laagdikte; zelfs enkele millimeters medium kunnen de dosis die de bodem van de kweek bereikt, aanzienlijk verminderen. Bij een dichte celbezetting komt hier een "inner-filter effect" bij, waarbij cellen nabij het oppervlak een groter deel van de dosis ontvangen dan cellen die dieper liggen. In microplaten leidt meniscusvorming aan het vloeistofoppervlak bovendien tot een inhomogene, positieafhankelijke bestralingssterkte binnen dezelfde well. Overal waar een van deze beïnvloedende factoren onbekend is, dient de werkelijke bestralingssterkte op de beoogde monsterlocatie te worden gemeten in plaats van in de vrije straal.
Fotonenergie, kwantumopbrengst en actiespectra
Twee grootheden verklaren waarom een identieke dosis niet automatisch een identiek effect oplevert zodra de golflengte verandert: fotonenergie en kwantumopbrengst.
De fotonenergie volgt uit
Efoton = h · c / λ
met de constante van Planck h = 6,626 × 10⁻³⁴ J·s, de lichtsnelheid c = 2,998 × 10⁸ m/s en de golflengte λ. Kortere golflengten bevatten daardoor meer energie per foton.
De kwantumopbrengst Φ beschrijft hoeveel fotochemische gebeurtenissen optreden per geabsorbeerd foton:
Φ = (aantal fotochemische gebeurtenissen) / (aantal geabsorbeerde fotonen)
Φ is geen natuurconstante; ze hangt af van het specifieke molecuul, de omgeving en vaak ook van de excitatiegolflengte zelf (IUPAC Gold Book). Een voorwaarde om beide grootheden zinvol toe te passen, is dat de straling daadwerkelijk wordt geabsorbeerd – fotonen die niet worden geabsorbeerd, dragen niet bij aan de reactie, ongeacht hun energie. Twee bronnen met een identieke bestralingssterkte maar een verschillende golflengte leveren doorgaans verschillende fotobiologische effecten op – zowel omdat het doelmolecuul in verschillende mate absorbeert, als omdat de kwantumopbrengst zelf golflengteafhankelijk kan zijn.
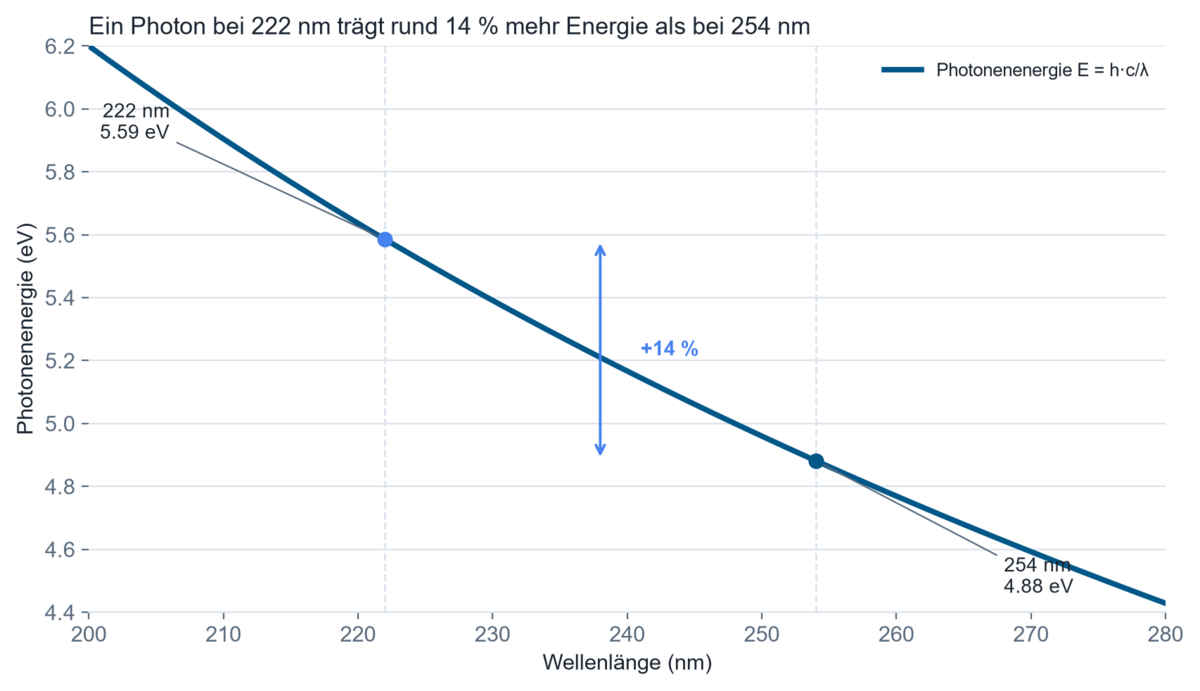
Praktijkvoorbeeld: fotonenergie bij 222 nm en 254 nm vergelijken
Vraag: Bij UV-desinfectie en fotobiologisch onderzoek worden steeds vaker excimeerbronnen op 222 nm gebruikt in plaats van conventionele lagedruk-kwiklampen op 254 nm. Hoe verschilt de fotonenergie tussen deze twee golflengten en wat betekent dat voor de fotochemische effectiviteit?
Aannames: monochromatische straling bij λ₁ = 222 nm en λ₂ = 254 nm; h = 6,626 × 10⁻³⁴ J·s; c = 2,998 × 10⁸ m/s.
Model: Ephoton = h · c / λ
Berekening:
E₁ = (6,626 × 10⁻³⁴ J·s × 2,998 × 10⁸ m/s) / 222 × 10⁻⁹ m ≈ 8,95 × 10⁻¹⁹ J
E₂ = (6,626 × 10⁻³⁴ J·s × 2,998 × 10⁸ m/s) / 254 × 10⁻⁹ m ≈ 7,82 × 10⁻¹⁹ J
Omgerekend naar elektronvolt (1 eV = 1,602 × 10⁻¹⁹ J): E₁ ≈ 5,59 eV, E₂ ≈ 4,88 eV.
Resultaat: een foton bij 222 nm bevat ongeveer 14 procent meer energie dan een foton bij 254 nm.
Technische interpretatie: dit verschil komt overeen met experimentele bevindingen dat de kwantumopbrengst voor fotolyse van nucleobasen en aminozuren bij 222 nm 4 tot 61 keer hoger is dan bij 254 nm (Jing et al., 2024, Water Research). In de praktijk betekent dit dat een gelijke radiometrische dosis (J/cm²) bij verschillende golflengten niet automatisch een vergelijkbaar biologisch effect oplevert – het meten en vermelden van bestralingssterkte alleen, zonder golflengtereferentie, is niet voldoende om een proces reproduceerbaar te beschrijven of over te dragen tussen bronnen.
Waar wordt gecontroleerde optische bestraling toegepast?
Dermatologie en fototherapie. Smalband UV-B (vaak rond 311 nm) wordt gebruikt voor de behandeling van psoriasis en vitiligo. De kritische grootheid hierbij is de individuele minimale erytheemdosis (MED) van de patiënt, die van persoon tot persoon verschilt en wordt beoordeeld aan de hand van het erytheem-actiespectrum volgens ISO/CIE 17166.
Fotodynamische therapie (PDT). Een fotosensitizer wordt geëxciteerd door licht waarvan de golflengte is afgestemd op zijn absorptiebanden – rond 405 nm (Soret-band) voor oppervlakkige laesies, of 630–635 nm voor diepere laesies. De kritische procesgrootheid is de indringdiepte, die het grootst is binnen het zogenoemde therapeutische venster tussen ongeveer 600 en 850 nm, waar verstrooiing en absorptie door weefsel minimaal zijn (overzicht van de fysica van PDT, PMC).
Cel- en microbiologie. In onderzoekslaboratoria worden bacterie- en celculturen onder gedefinieerde omstandigheden bestraald om DNA-herstelmechanismen, mutagenesegraden of fototoxiciteit te bestuderen, bijvoorbeeld met een BS-02-bestralingskamer. De kritische vereiste is de reproduceerbaarheid van de dosis op de werkelijke monsterlocatie over vele parallelle reeksen en experimentdagen (Estévez Castro et al., 2018).
Farmaceutisch fotostabiliteitsonderzoek. Volgens ICH Q1B moeten werkzame stoffen en afgewerkte geneesmiddelen worden blootgesteld aan een gedefinieerde dosis UV- en zichtbaar licht (ten minste 200 W·h/m² UV en 1,2 miljoen luxuur zichtbaar licht) om lichtgeïnduceerde degradatie te beoordelen. De kritische factor is de exacte spectrale overeenstemming van de testbron met het D65/ID65-referentiespectrum (EMA/ICH Q1B), meer hierover onder Farma & fotostabiliteit.
Optogenetica en neurowetenschap. Genetisch gecodeerde fotoreceptoren zoals channelrhodopsine (geactiveerd rond 473 nm) of halorhodopsine (geremd rond 590 nm) worden aangestuurd via vezelgekoppelde LED's of lasers. De kritische grootheid is de bestralingssterkte aan de vezeltip of op het doelweefsel, niet het uitgangsvermogen van de bron (overzicht van optogenetische lichtbronnen, PMC).
Fotobiotechnologie en bioprocestechniek. Licht wordt steeds vaker gebruikt als selectief hulpmiddel in de eiwitchemie – bijvoorbeeld voor de lichtgestuurde functionalisatie van biomolecules – en om fotosynthetisch actieve micro-organismen in bioreactoren te belichten (Berton & Holland, 2025). De kritische factor hierbij is de fotonenflux per volume-eenheid en een zo homogeen mogelijke belichting van het reactorvolume.
Cosmetica- en zonnefilteronderzoek. In-vitrotests van de werkzaamheid van UV-filters en fotosensitizers gebruiken erytheem- of fototoxiciteitsgewogen bestraling. De kritische factor is in hoeverre het testspectrum overeenkomt met het solaire UV-spectrum, aangezien individuele combinaties van werkzame stoffen sterk golflengteselectief kunnen zijn.
Hoe wordt de bestralingssterkte gemeten bij microplaten, gepulste bronnen en vezeltips?
Voor sterk parallelle screening in microplaten worden LED-arrays met individueel aanstuurbare golflengten en posities gebruikt om ruimtelijke inhomogeniteit te compenseren door afzonderlijke putjes te kalibreren.
Bij gepulste bronnen zoals xenon-flitslampen is een louter tijdgeïntegreerde meting ontoereikend wanneer de pulsvorm zelf fotobiologisch relevant is; hiervoor zijn tijdsopgeloste meetmethoden nodig.
Voor thermisch gevoelige monsters – bijvoorbeeld levend weefselmonsters of temperatuurgevoelige enzymen – worden gekoelde monsterhouders met continue temperatuurbewaking gecombineerd om fotochemische effecten duidelijk te scheiden van thermische effecten.
Voor in-vivotoepassingen zoals fiberoptische optogenetica of interstitiële PDT is meting in de vrije bundel principieel ontoereikend; de bestralingssterkte moet in plaats daarvan worden geschat aan de distale vezeltip of via een gevalideerd weefselmodel.
Welke grootheden moeten worden gemeten of bewaakt?
Het uitgangspunt voor elk meetplan is welke grootheid daadwerkelijk relevant is voor het betreffende biologische eindpunt – niet welk instrument toevallig beschikbaar is. Als slechts één, goed gekarakteriseerde golflengte wordt gebruikt en de weging van het actiespectrum al bekend is, kan een breedbandradiometer zoals de RMD Pro met een filtercombinatie die is afgestemd op dat actiespectrum voldoende zijn (zie UV-sensoren selecteren voor achtergrondinformatie over de sensorkeuze). Zodra meerdere golflengten met elkaar moeten worden vergeleken, gecombineerd of opnieuw beoordeeld, of wanneer het gaat om een onbekende of breedbandige, verouderende bron, is een spectrale meting met een spectroradiometer zoals de SR900 vereist, omdat achteraf geen spectrale informatie meer kan worden gereconstrueerd uit een integrale meetwaarde.
Metingen moeten altijd op de werkelijke monsterlocatie worden uitgevoerd – op de positie van de cellaag, niet in de vrije straal boven het deksel van het vat – omdat anders de verzwakking door het materiaal van het vat en het medium systematisch wordt onderschat. Relevante meetonzekerheden ontstaan door spectrale mismatch tussen de gevoeligheid van de sensor en het werkelijke spectrum van de bron, door de hoekafhankelijkheid van de sensorgevoeligheid (cosinusfout) bij niet-parallelle inval, en door de kalibratieonzekerheid van de gebruikte referentiestandaard. Ruimtelijk opgeloste metingen worden noodzakelijk zodra een monster groter is dan het uniform belichte gebied van de bron – bijvoorbeeld multiwellplaten onder één enkele LED-array. Temporele resolutie wordt relevant bij gepulste of driftende bronnen waarvan het uitgangsvermogen tijdens de blootstellingsperiode verandert.
Bij geautomatiseerde bestralingsprocessen – bijvoorbeeld seriematige experimenten met veel monsters over weken of maanden – is een eenmalige instelling van lampvermogen en blootstellingstijd niet voldoende, omdat de daadwerkelijke bestralingssterkte continu verandert door veroudering van de lamp, verontreiniging van de optiek en temperatuurdrift. Dosisgestuurde werking – zoals geïmplementeerd door de UV-MAT dosisbewaking in een bestralingskamer – meet continu de bestralingssterkte met een gekalibreerde sensor en beëindigt de blootstelling automatisch zodra de gewenste dosis is bereikt, in plaats van na een vaste tijd uit te schakelen. Dat ontkoppelt de daadwerkelijk toegediende dosis van de veroudering van de bron en houdt reeksen experimenten over lange periodes onderling vergelijkbaar.
Voor gereguleerde omgevingen – bijvoorbeeld GMP-aangrenzende testlaboratoria of geaccrediteerde kalibratielaboratoria volgens DIN EN ISO/IEC 17025:2018-03 – is bovendien traceerbare, gedocumenteerde registratie van elke afzonderlijke dosis relevant, zodat vergelijkingen tussen batches of experimenten achteraf verifieerbaar blijven; de metrologische herleidbaarheid van de gebruikte sensoren wordt gewaarborgd door het geaccrediteerde kalibratielaboratorium.
In de praktijk wordt de spectrale bestralingssterkte meestal vastgelegd met een gekalibreerde spectroradiometer die UV, zichtbaar licht en, waar relevant, het nabij-infrarode gebied in één meting bestrijkt. Voor routinematige metingen aan bekende bronnen worden radiometers met actiespectrumgewogen sensoren gebruikt, waarvan de spectrale gevoeligheid al is afgestemd op een gedefinieerd actiespectrum. Voor gedefinieerde, dosisgestuurde blootstellingen van cel- en bacteriekweken worden bestralingskamers zoals de UV-MAT gebruikt met onafhankelijk schakelbare spectrale kanalen, waarvan de dosisbewaking is gebaseerd op de daadwerkelijk gemeten – en niet alleen op de nominale – bestralingssterkte.
Wat blijkt uit gepubliceerd onderzoek?
Scheidt experimenteel het puur thermische effect van een blootstelling van het fotochemische effect – precies het soort overlap dat langere blootstellingen vaak versluieren.
Actual isothermal effects of water-filtered infrared A-irradiation
Höhn, Annika, et al. "Actual isothermal effects of water-filtered infrared A-irradiation." Photochemistry and Photobiology 91.4 (2015): 887–894.
Toont via genexpressiegegevens dat bestraling met 222 nm reparatie-enzymen direct fotolyseert, en levert de aanmerkelijk hogere kwantumopbrengst voor fotolyse van nucleobasen en aminozuren bij 222 nm versus 254 nm die ten grondslag ligt aan het uitgewerkte voorbeeld op deze pagina.
Suppression of photoreactivation of E. coli by excimer far-UV light (222 nm) via damage to multiple targets
Jing, Zi-Bo, et al. "Suppression of photoreactivation of E. coli by excimer far-UV light (222 nm) via damage to multiple targets." Water Research 255 (2024): 121533.
Karakteriseert de inactiveringskinetiek voor meerdere pathogenen en surrogaten onder 222 nm excimeerbestraling, en levert de orde van grootte van de dosis voor far-UVC-desinfectie die op deze pagina wordt aangehaald.
UV Inactivation of Common Pathogens and Surrogates Under 222 nm Irradiation from KrCl* Excimer Lamps
Ma, Ben, et al. "UV Inactivation of Common Pathogens and Surrogates Under 222 nm Irradiation from KrCl* Excimer Lamps." Photochemistry and Photobiology (2023).
Wat blijkt uit gepubliceerd onderzoek van klanten?
De volgende werken van gebruikers laten de breedte van het vakgebied zien – van huidreacties via reparatiemechanismen tot lichtgedreven eiwitchemie.
Onderzoekt hoe UV-blootstelling de ontstekingsreactie van immuuncellen in de huid verandert.
Influence of UV irradiation on the skin-immune cell inflammatory response
Miceli, Rebecca, et al. "Influence of UV irradiation on the skin-immune cell inflammatory response." Research Square (2026).
Selecteert mengsels van plantaardige verbindingen voor de formulering van zonnebrandmiddelen op basis van werkzaamheid en cytotoxiciteit – waarbij het beschermende effect als een spectraal gewogen grootheid wordt behandeld.
Rational Selection of Phytochemical Mixtures for Sunscreen Development Based on in vitro Efficacy and Cytotoxicity Profiles
Martínez, Silvia Ximena Barrios, et al. "Rational Selection of Phytochemical Mixtures for Sunscreen Development Based on in vitro Efficacy and Cytotoxicity Profiles." Revista Brasileira de Farmacognosia 36.1 (2026).
Vergelijkt straling en fototoxiciteit in dezelfde cellijnen en evalueert het versterkende effect van verschillende fotosensitizers, bestraald met een BS-04-bestralingskamer.
Comparison of Radio- and Phototoxicity in Association with an Enhancing Effect of the Photosensitizers Psoralen, Trioxsalen and Ortho-Iodo-Hoechst33258
Tietze, Katja, et al. "Comparison of Radio- and Phototoxicity in Association with an Enhancing Effect of the Photosensitizers Psoralen, Trioxsalen and Ortho-Iodo-Hoechst33258 on FaDu, PC-3, 4T1 and B16-F10 Cells." Biomedicines 13.1 (2024): 73.
Toont bij reparatie-deficiënte mutanten hoe sterk cellulaire reparatie de uitkomst van een UV-blootstelling bepaalt.
Influence of uvrA, recJ and recN gene mutations on nucleoid reorganization in UV-treated Escherichia coli cells
Estévez Castro, Carlos Felipe, Jorge Humberto Serment-Guerrero, and Jorge Luis Fuentes. "Influence of uvrA, recJ and recN gene mutations on nucleoid reorganization in UV-treated Escherichia coli cells." FEMS Microbiology Letters 365.11 (2018): fny110.
Gebruikt licht als een selectief hulpmiddel in de eiwitchemie in plaats van als stressfactor.
Light-induced chemistry for protein functionalisation
Berton, Cesare, and Jason P. Holland. "Light-induced chemistry for protein functionalisation." Chemical Communications (2025).
Binnen de vakgebieden fotobiologie, biotechnologie en geneeskunde hebben klanten van Opsytec in totaal 34 werken gepubliceerd; deze staan vermeld onder Publicaties van klanten – per onderwerp.
Technische achtergrond en verdere bronnen
- ISO/CIE 17166:2019 – Erythema reference action spectrum and standard erythema dose (iso.org)
- IEC 62471 (reeks) – Fotobiologische veiligheid van lampen en lampsystemen, incl. IEC 62471-6:2022 (UV-lampproducten) en IEC 62471-7:2023 (zichtbare straling) (webstore.iec.ch)
- DIN 5031-10:2018 – Optische stralingsfysica en verlichtingstechniek, deel 10: fotobiologisch werkzame straling, grootheden, symbolen en effecten (dinmedia.de)
- ICH Q1B – Fotostabiliteitstesten van nieuwe werkzame stoffen en geneesmiddelen (ema.europa.eu)
- BIPM, SI Brochure, bijlage 3 – Eenheden voor fotochemische en fotobiologische grootheden (bipm.org)
- ISO 21348:2007 – Definities van spectrale categorieën van zonnestraling (grenzen UV-A/-B/-C) (iso.org)
Veelgestelde vragen over fotobiologie en biotechnologie
Hoe werkt het biologische effect van UV-straling?
UV-fotonen worden geabsorbeerd door chromoforen zoals DNA-basen of eiwitten en veroorzaken fotochemische reacties – bijvoorbeeld DNA-schade of structurele veranderingen. De effectiviteit is sterk afhankelijk van de golflengte, omdat elke chromofoor zijn eigen absorptiespectrum heeft. Zonder absorptie treedt geen effect op, ongeacht het toegepaste vermogen.
Welke golflengte is geschikt voor fotodynamische therapie?
De golflengte wordt gekozen zodat deze overeenkomt met het absorptiespectrum van de gebruikte fotosensitizer. Blauw licht rond 405 nm is geschikt voor oppervlakkige laesies, rood licht rond 630–635 nm voor diepere gebieden omdat het sterker in het weefsel doordringt. De keuze is dus een afweging tussen absorptie-efficiëntie en penetratiediepte.
Welke dosis is nodig voor microbiële inactivatie?
De benodigde dosis hangt af van de golflengte en het organisme. Voor 222 nm-excimeerbronnen melden studies doses van ongeveer 10 mJ/cm² voor een 4-log-reductie van veel bacteriën en virussen; 254 nm-bronnen vereisen vaak vergelijkbare waarden, hoewel met andere effecten op weefsel. Literatuurwaarden gelden altijd voor de specifieke meetgeometrie en kunnen niet zonder verificatie worden overgenomen.
Wat is het verschil tussen bestralingssterkte en dosis?
Bestralingssterkte (W/m²) beschrijft het momentane vermogen per oppervlakte-eenheid; dosis (J/m²) is de tijdsintegraal daarvan. Doorgaans correleert de dosis met een biologisch effect, terwijl de bestralingssterkte bepaalt hoe snel die dosis wordt bereikt. Beide grootheden dienen daarom afzonderlijk te worden gedocumenteerd. Hoe bestralingssterkte, dosis en fluentie formeel van elkaar verschillen, wordt beschreven in het overzicht van radiometrische grootheden.
Waarom veroorzaakt een identieke dosis bij verschillende golflengtes verschillende effecten?
Omdat zowel de fotonenergie als de kwantumopbrengst golflengteafhankelijk zijn. Kortere golflengtes dragen meer energie per foton en kunnen andere fotochemische reactiepaden activeren, wat leidt tot duidelijk verschillende kwantumopbrengsten. Een dosiswaarde alleen, zonder verwijzing naar de golflengte, is daarom onvoldoende om effecten te vergelijken.
Hoe wordt de daadwerkelijke bestralingssterkte van een celkweek gemeten?
Idealiter op de werkelijke monsterlocatie, zo dicht mogelijk bij de cellaag, niet in de vrije bundel boven het vat. Vatmateriaal, deksel en kweekmedium verzwakken de straling op een golflengteafhankelijke manier, soms met ordes van grootte. Een meting buiten deze absorbers onderschat systematisch de werkelijke verzwakking.
Wanneer volstaat een breedbandmeting en wanneer is een spectrale meting nodig?
Een breedbandmeting met een op het actiespectrum afgestemde sensor volstaat wanneer een enkele, goed gekarakteriseerde golflengte wordt gebruikt. Zodra meerdere golflengtes moeten worden vergeleken, gecombineerd of opnieuw geëvalueerd, of wanneer de bron onbekend of breedbandig is, is een spectrale meting met een spectroradiometer vereist.
Welke rol speelt temperatuur bij fotobiologische experimenten?
Bronnen met een hoog vermogen verwarmen het monster meetbaar, en thermisch geactiveerde reacties kunnen het fotochemische effect overlappen of versterken. Een zuivere scheiding vereist ofwel een gekoelde monsterhouder ofwel een parallelle isotherme controlemeting. Zonder temperatuurcontrole kan een waargenomen effect niet betrouwbaar uitsluitend aan bestraling worden toegeschreven.
Verwante toepassingsgebieden
Fotobiologie en biotechnologie grenzen aan verschillende naburige gebieden: medische fototherapie past dezelfde fotobiologische principes toe op een door de arts voorgeschreven behandeling van patiënten, fotostabiliteit van farmaca test de lichtgevoeligheid van eindproducten in plaats van een biologisch effect, en arbeidsveiligheid en fotobiologische veiligheid behandelt dezelfde fysische grootheden voor onbedoelde in plaats van bewuste blootstelling. Ook aangrenzend zijn UV-desinfectie als gespecialiseerde inactivatietoepassing, en Planten, Landbouw & Voedseltechnologie voor het fotobiologische effect op plantmateriaal. De fysisch-chemische kant van excitatie, sensibilisatie en kwantumopbrengst wordt beschreven onder fotochemie.
Auteur: Dr. Mark Paravia
Dr.-Ing. Mark Paravia is directeur van Opsytec Dr. Gröbel GmbH in Ettlingen en leidt het geaccrediteerde kalibratielaboratorium. Na zijn onderzoek naar gepulste xenon-excimeerontladingen aan het Institute of Lighting Technology van het KIT ligt zijn huidige focus op optische stralingsmeettechniek. Hij is vicevoorzitter van de DIN-normcommissie FNL 7 "Optische straling" en lid van de DVGW-projectgroep UV-desinfectie.
Onzeker welke dosis via een deksel, medium en vaatwand daadwerkelijk een cellaag bereikt?
Onzeker welke dosis via een deksel, medium en vaatwand daadwerkelijk een cellaag bereikt? Een gedegen fotobiologische beoordeling begint met een meting op de werkelijke monsterlocatie – niet in de vrije straal van de lamp. Voor gedefinieerde, dosisgestuurde bestraling van cel- en bacteriekweken is de UV-MAT dosisbewaking goed geschikt; voor de spectrale karakterisering van onbekende of gecombineerde bronnen de SR900 spectroradiometer; en voor routinematige controle van bekende bronnen de RMD Pro radiometer. Kalibratie en metrologische herleidbaarheid van de gebruikte sensoren worden geboden door het geaccrediteerde kalibratielaboratorium conform ISO/IEC 17025. Neem contact met ons op over uw meettaak.
