


Fotobiologi og bioteknologi: kontrollert optisk bestråling av celler og vev
Fotobiologi undersøker hvordan optisk stråling – fra UV-C til nær-infrarødt – interagerer med biologisk materiale: med DNA, proteiner, fotosensibilisatorer, fotoreseptorer og cellestrukturer. Bioteknologi bruker denne kunnskapen som et bevisst verktøy – for å inaktivere mikroorganismer, kontrollere cellulære signalveier, utføre fotodynamisk behandling av vev, eller drive lysmediert modifikasjon av biomolekyler. Den sentrale tekniske utfordringen er at biologiske systemer ikke reagerer på elektrisk lampeeffekt eller en generell eksponeringstid, men på den spektrale irradiansen som faktisk når virkningsstedet, den resulterende dosen, og den bølgelengdeavhengige effektiviteten til enkelte fotoner. Uten metrologisk sporbar optisk måling forblir enhver biologisk observasjon bare delvis reproduserbar.

Hvordan utvikler teknologien seg?
Teknisk sett er det viktigste skiftet en overgang i lyskildene som brukes: bort fra bredbånds kvikksølvdamplamper og mot narrowband UV-LED og eksimerkilder. Dette skiftet hever kravene til fotobiologisk karakterisering, fordi hver nye bølgelengdekombinasjon krever sitt eget aksjonsspektrum, sin egen sikkerhetsprofil under IEC 62471, og sin egen dosimetri. Økende regulatorisk oppmerksomhet – for eksempel oppdateringene fra 2022 og 2023 av IEC 62471-6 for UV-lampeprodukter og IEC 62471-7 for synlig strålingHOLD – er en direkte konsekvens av denne økningen i antall kildetyper.
Skiftet fra kvikksølvlamper til UV-LED endrer ikke bare kostnad og effektivitet, men også hvilke metoder som er tilgjengelige: fordi LED-array gir flere bølgelengder samtidig og uavhengig styrbare, kan aksjonsspektre nå bestemmes direkte og eksperimentelt ved å variere eksitasjonsbølgelengden, i stedet for å basere seg på et fåtall fastsatte lampelinjer. Etableringen av far-UVC-kilder rundt 222 nm åpner for anvendelser utover klassisk desinfeksjon (se UV-desinfeksjon), fordi deres begrensede penetrasjon i vev og deres distinkte fotokjemi – underbygget av markant høyere kvanteutbytte for fotolyse av visse klasser biomolekyler – muliggjør nye sikkerhetsprofiler og virkningsmekanismer (Jing et al., 2024, Water Research). På det regulatoriske området driver Minamata-konvensjonen den globale utfasingen av kvikksølvholdige lamper til generell belysning innen 2027; spesialiserte UV-kilder til forskning og desinfeksjon er så langt håndtert gjennom separate unntak, men står også under økende press om å tilpasse seg (Minamata Convention on Mercury – Exemptions). Parallelt har IEC og CIE oppdatert sine sikkerhetsstandarder for lamper og lampesystemer – IEC 62471-6:2022 for UV-lampeprodukter inkludert UV-LED, og IEC 62471-7:2023 for kilder som hovedsakelig avgir synlig lys – noe som gjør fotobiologisk risikoklassifisering av nye LED- og laserkilder i økende grad bindende (IEC Webstore).
Markedsstørrelser, vekstrater og kilder for dette anvendelsesområdet er oppsummert på siden Markedsutvikling for UV-teknologi.
Hvordan virker optisk stråling på biologiske systemer?
Biologiske effekter oppstår som følge av at fotoner absorberes av spesifikke molekyler, kromoforene: nukleinsyrer absorberer fortrinnsvis i UV-C- og UV-B-området, aromatiske aminosyrer og flaviner i UV-A- og blåtonet område, porfyriner og andre fotosensibilisatorer ofte i det blå og røde synlige området. Når et foton med passende energi treffer en kromofor, kan det utløse en elektronisk overgang som starter en fotokjemisk reaksjon – for eksempel DNA-skade, singlett-oksygendannelse eller en konformasjonsendring i et fotoreseptorprotein. Sannsynligheten for denne omdannelsen beskrives av kvanteutbyttet. Fordi absorpsjonsspektre er bølgelengdeavhengige, bestemmes en kildes fotobiologiske effektivitet ikke av dens totale effekt, men av produktet av spektral irradians og et bølgelengdeavhengig aksjonsspektrum som angir den relative effektiviteten til hver bølgelengde for et gitt biologisk endepunkt (BIPM SI Brochure, Appendix 3).
Hvilke teknologier og lyskilder brukes?
Et bredt spekter av kildeteknologier er tilgjengelig for kontrollert bestråling av biologiske prøver, og de skiller seg i båndbredde, bølgelengdeområde, termisk belastning på prøven og aldringsatferd.
Lavtrykks-kvikksølvlamper avgir nesten monokromatisk stråling ved 253,7 nm og brukes tradisjonelt for UV-C-anvendelser innen mikrobiologi og desinfeksjon. Middels- og høytrykks-kvikksølvlamper leverer et bredbånds linjespektrum fra UV-B til synlig lys og fungerer blant annet som en rimelig kilde for fotostabilitetstesting. Xenon-buelamper simulerer sollys (D65/ID65) med et filtrert, kontinuerlig spektrum og er referansekilden i farmasøytisk fotostabilitetstesting i henhold til ICH Q1B. Eksimerlamper, for eksempel basert på kryptonklorid, avgir kvasi-monokromatisk stråling – for eksempel ved 222 nm – og blir stadig mer relevante utover ren desinfeksjon på grunn av sin grunnere inntrengningsdybde i hud og øyne og sin distinkte fotokjemi (Ma et al., 2023). UV- og synlig-LED-er er smalbåndede, kobler nesten øyeblikkelig, inneholder ikke kvikksølv, og kan kombineres i matriser som spenner over flere bølgelengder, noe som i stor grad forenkler direkte registrering av aksjonsspektre. Lasere og laserdioder leverer høy effekttetthet på et svært lite areal og brukes fremfor alt der lys må ledes via fiberoptikk til et definert sted, som i optogenetikk eller fokusert fotodynamisk behandling.
| Teknologi | Egenskaper | Fordeler / begrensninger | Typisk anvendelse |
|---|---|---|---|
| Lavtrykks-kvikksølvlampe | kvasi-monokromatisk, ca. 254 nm | Høy UV-C-effektivitet, godt etablert, lav kostnad. Kvikksølvinnhold, aldring, langsom tenning | Mikrobiologisk inaktivering |
| Middels-/høytrykks-kvikksølvlampe | bredbånds linjespektrum, UV-B til synlig | Høy total utgangseffekt. Sterk varmeutvikling, vanskelig å filtrere | Fotostabilitetstesting, UV-herding |
| Xenon-buelampe (filtrert) | kontinuerlig, dagslyslignende spektrum | Reproduserbart referansespektrum (D65/ID65). Kalibreringsarbeid, høy varmebelastning | Fotostabilitetstesting, solkremforskning |
| Eksimerlampe (f.eks. KrCl*, 222 nm) | kvasi-monokromatisk, kortbølget | Grunn inntrengning i vev, kvikksølvfri. Begrenset effekttetthet, spesialisert optikk kreves | Far-UVC-forskning, inaktivering nær overflaten |
| UV/synlig LED | smalbåndet, flere bølgelengder kan kombineres | Lav termisk belastning, rask kobling, lang levetid. Lavere effekt per enhet enn utladningslamper | Bestemmelse av aksjonsspektre, PDT, optogenetikk |
| Laser / laserdiode | monokromatisk, høy effekttetthet, fiberkoblingsbar | Presis fokusering, målrettet lystilførsel. Høy kostnad, sikkerhetsmessig merarbeid | Optogenetikk, fokusert PDT |
Hvilke prosessstørrelser er avgjørende?
Den fotobiologiske effekten av en eksponering bestemmes ikke av én enkelt størrelse, men av samspillet mellom flere fysiske størrelser som må registreres separat.
Irradians (i W/m² eller mW/cm²) beskriver strålingseffekten som treffer en overflate, og bestemmer hvor raskt en dose oppnås. Dose, eller stråleeksponering (i J/m² eller mJ/cm²), er tidsintegralet av irradiansen og er den størrelsen som vanligvis korreleres med en biologisk effekt som en logreduksjon eller et erytem. Spektral irradians (W/(m²·nm)) er grunnstørrelsen når flere bølgelengder skal sammenlignes, kombineres eller vektes med et aksjonsspektrum – enhver ønsket vektet størrelse kan utledes fra den, men ikke omvendt. Effektiv, aksjonsspektrumvektet irradians tar hensyn til at ikke hver watt optisk effekt er like virkningsfull; bare den andelen som vektes med det relevante aksjonsspektrumet, teller. Fotonfluks (fotoner per sekund og areal, ofte oppgitt som µmol·m⁻²·s⁻¹) er viktig i fotobioteknologi fordi fotokjemiske reaksjoner til syvende og sist er fotonbegrenset, ikke energibegrenset. Bestrålingstid og prøvetemperatur må registreres uavhengig av hverandre, ettersom termiske effekter kan overlappe fotokjemiske effekter uten at dette fremgår av dosen alene.
Hva begrenser prosessen eller forårsaker feil?
En vanlig feil er å likestille elektrisk lampeeffekt med optisk dose der virkningen skjer. Mellom lampen og målstrukturen ligger avstand, optikk, eventuelt et filter, karveggen, et lokk, kulturmediet og – ved tett utsæd – cellene selv; hvert av disse lagene svekker strålingen på en bølgelengdeavhengig måte. En måling tatt over prøvekaret beskriver derfor kilden, ikke den faktiske eksponeringen av cellelaget.
Like vanlig er antakelsen om at det er tilstrekkelig dokumentasjon å angi tid alene. Etter Bunsen–Roscoes reciprocitetslov er produktet av irradians og tid konstant for rent fotokjemiske prosesser; for biologiske systemer gjelder denne reciprociteten imidlertid bare innenfor et begrenset intensitets- og tidsvindu. Reparasjonsmekanismer, oksygentilførsel og massetransport foregår på sine egne tidsskalaer, slik at samme dose levert ved høy irradians over kort tid kan gi et annet resultat enn samme dose ved lav irradians over lang tid (oversikt over reciprocitetssvikt i fotobiologi; studie om fotobiologiske reciprocitetsgrenser). Alle som sammenligner forsøksserier bør derfor angi irradians, tid og dose separat, i stedet for å behandle en kortere eksponering ved høyere intensitet som en nøytral omregning.
Et tredje, ofte underdrevet punkt, er å forveksle doser fra litteraturen med direkte overførbare prosessverdier: en inaktiveringsdose på for eksempel 10 mJ/cm² rapportert for en bestemt 222 nm eksimerkilde (Ma et al., 2023) gjelder for den målegeometrien og matriksen som er beskrevet der – å overføre den til en annen prøvetykkelse, et turbid medium eller en annen bølgelengde er ikke tillatt uten en ny måling. Til sist blir det ofte undervurdert at termiske og fotokjemiske effekter kan overlappe: en kraftig, bredbåndet kilde varmer prøven merkbart, og en rent termisk utløst reaksjon kan bare skilles fra den fotokjemiske effekten hvis begge effektene registreres isolert (Höhn et al., 2015).
Hvilken innflytelse har kar-materiale, kulturmedium og geometri?
Den spektrale transmittansen til prøvekar er sterkt bølgelengdeavhengig og er i praksis en av de største, men minst dokumenterte, feilkildene. Standard lokk og plater av polystyren kan dempe UV-C- og UV-B-stråling flere størrelsesordener mer enn UV-A eller synlig lys, slik at et eksperiment som bare er dokumentert som «UV-bestråling» i realiteten kan ha gitt svært forskjellige prøvedoser avhengig av hvilket kar som ble brukt. Kulturmediene selv inneholder UV- og blåabsorberende komponenter – fenolrødt som pH-indikator, eller riboflavin, for eksempel – som i henhold til Beer-Lamberts lov demper irradiansen eksponentielt med økende lagtykkelse; selv noen få millimeter medium kan redusere dosen som når bunnen av kulturen betydelig. Ved tett cellesåing kommer en «indre filtereffekt» i tillegg, der celler nær overflaten mottar en større andel av dosen enn de som ligger dypere. I mikroplater fører dannelse av meniskus ved væskeoverflaten dessuten til en inhomogen, posisjonsavhengig irradians innenfor samme brønn. Der en av disse påvirkningsfaktorene er ukjent, bør den faktiske irradiansen måles på det tiltenkte prøvestedet i stedet for i fristrålen.
Fotonenergi, kvanteutbytte og virkningsspektre
То størrelser forklarer hvorfor en identisk dose ikke automatisk gir en identisk effekt når bølgelengden endres: fotonenergi og kvanteutbytte.
Fotonenergi følger av
Ephoton = h · c / λ
med Plancks konstant h = 6,626 × 10⁻³⁴ J·s, lysets hastighet c = 2,998 × 10⁸ m/s og bølgelengden λ. Kortere bølgelengder inneholder derfor mer energi per foton.
Kvanteutbyttet Φ beskriver hvor mange fotokjemiske hendelser som skjer per absorbert foton:
Φ = (antall fotokjemiske hendelser) / (antall absorberte fotoner)
Φ er ikke en naturkonstant; det avhenger av det spesifikke molekylet, dets omgivelser og ofte av eksitasjonsbølgelengden selv (IUPAC Gold Book). En forutsetning for å bruke begge størrelsene meningsfullt er at strålingen faktisk absorberes – fotoner som ikke absorberes bidrar ikke til reaksjonen, uavhengig av deres energi. To kilder med identisk irradians men forskjellig bølgelengde gir typisk forskjellige fotobiologiske effekter – både fordi målmolekylet absorberer i ulik grad, og fordi kvanteutbyttet selv kan være bølgelengdeavhengig.
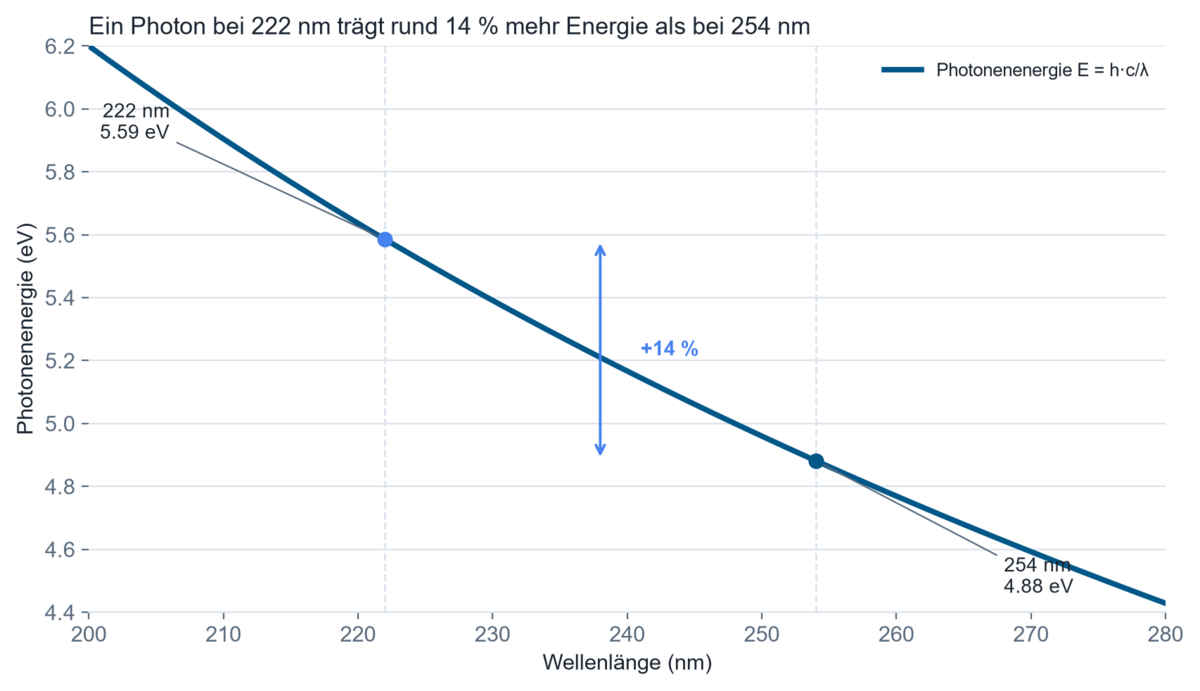
Eksempel: sammenligning av fotonenergi ved 222 nm og 254 nm
Spørsmål: UV-desinfeksjon og fotobiologisk forskning bruker i økende grad eksimerkilder ved 222 nm i stedet for konvensjonelle lavtrykks-kvikksølvlamper ved 254 nm. Hvordan skiller fotonenergien seg mellom de to bølgelengdene, og hva betyr det for fotokjemisk effektivitet?
Forutsetninger: monokromatisk stråling ved λ₁ = 222 nm og λ₂ = 254 nm; h = 6,626 × 10⁻³⁴ J·s; c = 2,998 × 10⁸ m/s.
Modell: Ephoton = h · c / λ
Beregning:
E₁ = (6,626 × 10⁻³⁴ J·s × 2,998 × 10⁸ m/s) / 222 × 10⁻⁹ m ≈ 8,95 × 10⁻¹⁹ J
E₂ = (6,626 × 10⁻³⁴ J·s × 2,998 × 10⁸ m/s) / 254 × 10⁻⁹ m ≈ 7,82 × 10⁻¹⁹ J
Omregnet til elektronvolt (1 eV = 1,602 × 10⁻¹⁹ J): E₁ ≈ 5,59 eV, E₂ ≈ 4,88 eV.
Resultat: et foton ved 222 nm har omtrent 14 % mer energi enn et foton ved 254 nm.
Teknisk tolkning: denne forskjellen stemmer med eksperimentelle funn som viser at kvanteutbyttet for fotolyse av nukleobaser og aminosyrer ved 222 nm er 4 til 61 ganger høyere enn ved 254 nm (Jing et al., 2024, Water Research). I praksis betyr dette at en lik radiometrisk dose (J/cm²) ved forskjellige bølgelengder ikke automatisk gir en sammenlignbar biologisk effekt – å måle og angi irradians alene, uten en referanse til bølgelengde, er ikke tilstrekkelig for å beskrive en prosess reproduserbart eller overføre den mellom kilder.
Hvor brukes kontrollert optisk bestråling?
Dermatologi og fototerapi. Smalbånds UV-B (ofte rundt 311 nm) brukes til å behandle psoriasis og vitiligo. Den kritiske størrelsen her er den enkelte pasientens minimale erytemdose (MED), som varierer fra person til person og evalueres mot erytemets aksjonsspektrum i henhold til ISO/CIE 17166.
Fotodynamisk terapi (PDT). En fotosensitizer eksiteres av lys med en bølgelengde som er tilpasset dens absorpsjonsbånd – rundt 405 nm (Soret-bånd) for overfladiske lesjoner, eller 630–635 nm for dypere lesjoner. Den kritiske prosessstørrelsen er penetrasjonsdybde, som er størst i det såkalte terapeutiske vinduet mellom omtrent 600 og 850 nm, hvor spredning og absorpsjon i vev er minimal (oversikt over PDT-fysikk, PMC).
Celle- og mikrobiologi. I forskningslaboratorier bestråles bakterie- og cellekulturer under definerte betingelser for å studere DNA-reparasjonsmekanismer, mutagenesehastigheter eller fototoksisitet, for eksempel med et BS-02 bestrålingskammer. Det kritiske kravet er reproduserbarhet av dosen på selve prøvestedet gjennom mange parallelle kjøringer og forsøksdager (Estévez Castro et al., 2018).
Farmasøytisk fotostabilitetstesting. I henhold til ICH Q1B må aktive stoffer og ferdige legemidler eksponeres for en definert dose UV- og synlig lys (minst 200 W·h/m² UV og 1,2 millioner lux-timer synlig lys) for å vurdere lysindusert degradering. Den kritiske faktoren er den nøyaktige spektrale samsvaren mellom testkilden og D65/ID65-referansespekteret (EMA/ICH Q1B), som er nærmere beskrevet under Farmasi & Fotostabilitet.
Optogenetikk og nevrovitenskap. Genetisk kodede fotoreseptorer som channelrhodopsin (aktivert rundt 473 nm) eller halorhodopsin (hemmet rundt 590 nm) styres via fiberkoblede LED-er eller lasere. Den kritiske størrelsen er irradiansen ved fiberspissen eller ved målvevet, ikke kildens utgangseffekt (oversikt over optogenetiske lyskilder, PMC).
Fotobioteknologi og bioprosessteknikk. Lys brukes i økende grad som et selektivt verktøy innen proteinkjemi – for eksempel til lysdrevet funksjonalisering av biomolekyler – samt til å belyse fotosyntetisk aktive mikroorganismer i bioreaktorer (Berton & Holland, 2025). Den kritiske faktoren her er fotonfluks per volumenhet og den mest mulig homogene belysningen av reaktorvolumet.
Kosmetikk og solkremforskning. In-vitro-tester av UV-filtres og fotosensitizeres effektivitet bruker erytem- eller fototoksisitetsveid bestråling. Den kritiske faktoren er hvor godt testspekteret samsvarer med solens UV-spektrum, ettersom enkelte kombinasjoner av aktive stoffer kan være svært bølgelengdeselektive.
Hvordan måles irradians ved mikroplater, pulsede kilder og fiberspisser?
For svært parallell screening i mikroplater brukes LED-array med individuelt adresserbare bølgelengder og posisjoner for å kompensere for romlig inhomogenitet ved å kalibrere enkeltbrønner.
For pulsede kilder som xenon-blitslamper er en rent tidsintegrerende måling utilstrekkelig når selve pulsformen er fotobiologisk relevant; her kreves tidsoppløste målemetoder.
For termisk følsomme prøver – for eksempel levende vevsprøver eller temperaturfølsomme enzymer – kombineres kjølte prøveholdere med kontinuerlig temperaturovervåking for å skille rent mellom fotokjemiske og termiske effekter.
For in-vivo-applikasjoner som fiberoptisk optogenetikk eller interstitiell PDT er måling i fri stråle grunnleggende utilstrekkelig; irradiansen må i stedet estimeres ved den distale fiberspissen eller via en validert vevsmodell.
Hvilke størrelser må måles eller overvåkes?
Utgangspunktet for enhver måleplan er hvilken størrelse som faktisk har betydning for det aktuelle biologiske endepunktet – ikke hvilket instrument som tilfeldigvis er tilgjengelig. Hvis kun en enkelt, godt karakterisert bølgelengde brukes og aksjonsspektervektingen allerede er kjent, kan et bredbåndsradiometer som RMD Pro med en filterkombinasjon tilpasset dette aksjonsspekteret være tilstrekkelig (se Valg av UV-sensorer for bakgrunn om sensorvalg). Så snart flere bølgelengder skal sammenlignes, kombineres eller evalueres på nytt, eller når en ukjent eller bredbånds, aldrende kilde er involvert, er en spektral måling med et spektroradiometer som SR900 nødvendig, fordi ingen spektral informasjon kan gjenvinnes fra en integrert avlesning etterpå.
Målinger bør alltid tas på selve prøvestedet – ved cellelagets posisjon, ikke i fristrålen over beholderlokket – fordi svekkelse fra beholdermaterialet og mediet ellers systematisk underestimeres. Relevante målusikkerheter oppstår fra spektral mismatch mellom sensorresponsivitet og det faktiske kildespekteret, fra vinkelavhengigheten til sensorresponsiviteten (kosinusfeil) ved ikke-parallell innfallsvinkel, og fra kalibreringsusikkerheten til referansestandarden som brukes. Romlig oppløste målinger blir nødvendige når en prøve er større enn det jevnt belyste området til kilden – multiwell-plater under en enkelt LED-array, for eksempel. Tidsoppløsning blir relevant for pulserende eller driftende kilder hvis utgang endres innenfor eksponeringsperioden.
I automatiserte bestrålingsprosesser – seriesforsøk med mange prøver over uker eller måneder, for eksempel – er en engangsinnstilling av lampeeffekt og eksponeringstid ikke nok, fordi den faktiske irradiansen endres kontinuerlig gjennom lampealdring, kontaminering av optikk og temperaturdrift. Dosekontrollert drift – som implementert av UV-MAT dosekontroll i et bestrålingskammer – måler kontinuerlig irradians med en kalibrert sensor og avslutter automatisk eksponeringen når måldosen er nådd, i stedet for å slå av etter en fast tid. Det frikobler den faktisk leverte dosen fra aldringen av kilden og holder serier av forsøk sammenlignbare over lange perioder.
For regulerte miljøer – GMP-nære testlaboratorier eller akkrediterte kalibreringslaboratorier under DIN EN ISO/IEC 17025:2018-03, for eksempel – er sporbar, dokumentert logging av hver enkelt dose i tillegg relevant, slik at batch- eller forsøkssammenligninger fortsatt kan verifiseres etterpå; metrologisk sporbarhet for sensorene som brukes leveres av det akkrediterte kalibreringslaboratoriet.
I praksis fanges spektral irradians vanligvis opp med et kalibrert spektroradiometer som dekker UV, synlig lys og, der relevant, nær-infrarødt område i en enkelt måling. For rutinemålinger på kjente kilder brukes radiometre med aksjonsspektervektede sensorer, hvis spektrale responsivitet allerede er formet til å matche et definert aksjonsspekter. For definerte, dosekontrollerte eksponeringer av celle- og bakteriekulturer brukes bestrålingskamre som UV-MAT med uavhengig kobbelbare spektrale kanaler, hvis dosekontroll er basert på den faktisk målte – ikke bare den nominelle – irradiansen.
Hva viser publisert forskning?
Skiller experimentelt den rent termiske effekten fra den fotokjemiske effekten av en eksponering – nettopp den typen overlapp som lengre eksponeringer ofte skjuler.
Actual isothermal effects of water-filtered infrared A-irradiation
Höhn, Annika, et al. "Actual isothermal effects of water-filtered infrared A-irradiation." Photochemistry and Photobiology 91.4 (2015): 887–894.
Viser via genekspresjonsdata at 222 nm-bestråling direkte fotolyserer reparasjonsenzymer, og gir det markant høyere kvanteutbyttet for fotolyse av nukleobaser og aminosyrer ved 222 nm versus 254 nm som ligger til grunn for det utregnede eksempelet på denne siden.
Suppression of photoreactivation of E. coli by excimer far-UV light (222 nm) via damage to multiple targets
Jing, Zi-Bo, et al. "Suppression of photoreactivation of E. coli by excimer far-UV light (222 nm) via damage to multiple targets." Water Research 255 (2024): 121533.
Karakteriserer inaktiveringskinetikk for flere patogener og surrogater under 222 nm eksimerbestråling, og gir størrelsesordenen for dose ved far-UVC-desinfeksjon som er sitert på denne siden.
UV Inactivation of Common Pathogens and Surrogates Under 222 nm Irradiation from KrCl* Excimer Lamps
Ma, Ben, et al. "UV Inactivation of Common Pathogens and Surrogates Under 222 nm Irradiation from KrCl* Excimer Lamps." Photochemistry and Photobiology (2023).
Hva viser publisert forskning fra kunder?
Følgende arbeider fra brukere viser bredden i fagområdet – fra hudreaksjoner via reparasjonsmekanismer til lysdrevet proteinkjemi.
Undersøker hvordan UV-eksponering endrer den inflammatoriske responsen til hudens immunceller.
Influence of UV irradiation on the skin-immune cell inflammatory response
Miceli, Rebecca, et al. "Influence of UV irradiation on the skin-immune cell inflammatory response." Research Square (2026).
Velger blandinger av plantebaserte forbindelser for solkremformulering basert på effekt og cytotoksisitet – der beskyttende effekt behandles som en spektralt vektet størrelse.
Rational Selection of Phytochemical Mixtures for Sunscreen Development Based on in vitro Efficacy and Cytotoxicity Profiles
Martínez, Silvia Ximena Barrios, et al. "Rational Selection of Phytochemical Mixtures for Sunscreen Development Based on in vitro Efficacy and Cytotoxicity Profiles." Revista Brasileira de Farmacognosia 36.1 (2026).
Sammenligner stråling og fototoksisitet i de samme cellelinjene og evaluerer den forsterkende effekten av flere fotosensibilisatorer, bestrålt med et BS-04 bestrålingskammer.
Comparison of Radio- and Phototoxicity in Association with an Enhancing Effect of the Photosensitizers Psoralen, Trioxsalen and Ortho-Iodo-Hoechst33258
Tietze, Katja, et al. "Comparison of Radio- and Phototoxicity in Association with an Enhancing Effect of the Photosensitizers Psoralen, Trioxsalen and Ortho-Iodo-Hoechst33258 on FaDu, PC-3, 4T1 and B16-F10 Cells." Biomedicines 13.1 (2024): 73.
Viser i reparasjonsdefekte mutanter hvor sterkt cellulær reparasjon avgjør utfallet av en UV-eksponering.
Influence of uvrA, recJ and recN gene mutations on nucleoid reorganization in UV-treated Escherichia coli cells
Estévez Castro, Carlos Felipe, Jorge Humberto Serment-Guerrero, and Jorge Luis Fuentes. "Influence of uvrA, recJ and recN gene mutations on nucleoid reorganization in UV-treated Escherichia coli cells." FEMS Microbiology Letters 365.11 (2018): fny110.
Bruker lys som et selektivt verktøy i proteinkjemi snarere enn som en stressfaktor.
Light-induced chemistry for protein functionalisation
Berton, Cesare, and Jason P. Holland. "Light-induced chemistry for protein functionalisation." Chemical Communications (2025).
Innenfor fagområdene fotobiologi, bioteknologi og medisin har Opsytec-kunder publisert totalt 34 arbeider; de er listet under Publikasjoner fra kunder – etter emne.
Teknisk bakgrunn og flere kilder
- ISO/CIE 17166:2019 – Referansevirkningsspektrum for erytem og standard erytemdose (iso.org)
- IEC 62471 (serie) – Fotobiologisk sikkerhet for lamper og lampesystemer, inkl. IEC 62471-6:2022 (UV-lampeprodukter) og IEC 62471-7:2023 (synlig stråling) (webstore.iec.ch)
- DIN 5031-10:2018 – Optisk strålingsfysikk og lysteknikk, del 10: Fotobiologisk virksom stråling, størrelser, symboler og virkninger (dinmedia.de)
- ICH Q1B – Fotostabilitetstesting av nye virkestoffer og legemidler (ema.europa.eu)
- BIPM, SI-brosjyren, vedlegg 3 – Enheter for fotokjemiske og fotobiologiske størrelser (bipm.org)
- ISO 21348:2007 – Definisjoner av spektrale kategorier for solirradians (grenser for UV-A/-B/-C) (iso.org)
Ofte stilte spørsmål om fotobiologi og bioteknologi
Hvordan virker den biologiske effekten av UV-stråling?
UV-fotoner absorberes av kromoforer som DNA-baser eller proteiner og utløser fotokjemiske reaksjoner – for eksempel DNA-skade eller strukturelle endringer. Effektiviteten avhenger sterkt av bølgelengde, fordi hver kromofor har sitt eget absorpsjonsspektrum. Uten absorpsjon oppstår ingen effekt, uansett hvilken effekt som tilføres.
Hvilken bølgelengde er egnet for fotodynamisk terapi?
Bølgelengden velges for å samsvare med absorpsjonsspektrumet til den fotosensitiveren som brukes. Blått lys rundt 405 nm passer for overfladiske lesjoner, rødt lys rundt 630–635 nm passer for dypere regioner fordi det penetrerer vev sterkere. Valget er derfor en avveining mellom absorpsjonseffektivitet og penetrasjonsdybde.
Hvilken dose er nødvendig for mikrobiell inaktivering?
Nødvendig dose avhenger av bølgelengde og organisme. For 222 nm eksimerkilder rapporterer studier doser på rundt 10 mJ/cm² for en 4-log reduksjon av mange bakterier og virus; 254 nm-kilder krever ofte sammenlignbare verdier, men med andre effekter på vev. Litteraturverdier gjelder alltid for den spesifikke målegeometrien og kan ikke overføres uten verifisering.
Hva er forskjellen mellom irradians og dose?
Irradians (W/m²) beskriver momentan effekt per arealenhet; dose (J/m²) er tidsintegralet av dette. Det er typisk dosen som korrelerer med en biologisk effekt, mens irradiansen bestemmer hvor raskt denne dosen oppnås. Begge størrelser bør derfor dokumenteres separat. Hvordan irradians, dose og fluens skiller seg formelt, er beskrevet i oversikten over radiometriske størrelser.
Hvorfor gir en identisk dose ved ulike bølgelengder forskjellige effekter?
Fordi både fotonenergi og kvanteutbytte er bølgelengdeavhengige. Kortere bølgelengder bærer mer energi per foton og kan aktivere andre fotokjemiske reaksjonsveier, noe som fører til markant forskjellige kvanteutbytter. Et dosetall alene, uten en bølgelengdereferanse, er derfor ikke tilstrekkelig for å sammenligne effekter.
Hvordan måles den faktiske irradiansen til en cellekultur?
Ideelt sett på selve prøvestedet, så nær cellelaget som mulig, ikke i fristrålen over beholderen. Beholdermateriale, lokk og kulturmedium svekker strålingen på en bølgelengdeavhengig måte, noen ganger med flere størrelsesordener. En måling utført utenfor disse absorbatorene underestimerer systematisk den faktiske svekkelsen.
Når er en bredbåndsmåling tilstrekkelig, og når trengs en spektral måling?
En bredbåndsmåling med en sensor tilpasset virkningsspekteret er tilstrekkelig når en enkelt, godt karakterisert bølgelengde brukes. Så snart flere bølgelengder skal sammenlignes, kombineres eller evalueres på nytt, eller kilden er ukjent eller bredbånds, kreves en spektral måling med et spektroradiometer.
Hvilken rolle spiller temperatur i fotobiologiske eksperimenter?
Kilder med høy effekt varmer prøven merkbart, og termisk utløste reaksjoner kan overlappe eller forsterke den fotokjemiske effekten. En ren separasjon krever enten en kjølt prøveholder eller en parallell isoterm kontrollmåling. Uten temperaturkontroll kan en observert effekt ikke pålitelig tilskrives bestråling alene.
Relaterte anvendelsesområder
Fotobiologi og bioteknologi grenser til flere nærliggende felt: medisinsk fototerapi anvender de samme fotobiologiske prinsippene på legeforeskrevet behandling av pasienter, fotostabilitet innen farmasi tester lysfølsomheten til ferdige produkter i stedet for en biologisk effekt, og arbeidsmiljø og fotobiologisk sikkerhet tar for seg de samme fysiske størrelsene for utilsiktet i stedet for tilsiktet eksponering. Også nærliggende er UV-desinfeksjon som en spesialisert inaktiveringsanvendelse, og Planter, landbruk og næringsmiddelteknologi for den fotobiologiske effekten på plantemateriale. Den fysikalsk-kjemiske siden av eksitasjon, sensitisering og kvanteutbytte er beskrevet under fotokjemi.
Forfatter: Dr. Mark Paravia
Dr.-Ing. Mark Paravia er administrerende direktør i Opsytec Dr. Gröbel GmbH i Ettlingen og leder det akkrediterte kalibreringslaboratoriet. Etter sin forskning på pulserte xenon-eksimerutladninger ved Institute of Lighting Technology ved KIT, er hans nåværende fokus på optisk strålingsmåleteknikk. Han er nestleder for DIN-standardkomiteen FNL 7 «Optical Radiation», og medlem av DVGW-prosjektgruppen for UV-desinfeksjon.
Usikker på hvilken dose som faktisk når et cellelag gjennom lokk, medium og karvegg
Usikker på hvilken dose som faktisk når et cellelag gjennom lokk, medium og karvegg? En solid fotobiologisk vurdering starter med en måling på det reelle prøvestedet – ikke i lampens frie stråle. For definert, dosekontrollert bestråling av celle- og bakteriekulturer egner UV-MAT dosekontroll seg godt; for spektral karakterisering av ukjente eller kombinerte kilder SR900 spektroradiometer; og for rutinemessig overvåking av kjente kilder RMD Pro radiometer. Kalibrering og metrologisk sporbarhet for sensorene som brukes, leveres av det akkrediterte kalibreringslaboratoriet i henhold til ISO/IEC 17025. Ta kontakt om din måleoppgave.
