


Photobiologie et biotechnologie : irradiation optique contrôlée de cellules et de tissus
La photobiologie étudie la manière dont le rayonnement optique – de l'UV-C au proche infrarouge – interagit avec la matière biologique : avec l'ADN, les protéines, les photosensibilisateurs, les photorécepteurs et les structures cellulaires. La biotechnologie met ces connaissances en œuvre comme un outil délibéré – pour inactiver des micro-organismes, contrôler des voies de signalisation cellulaire, réaliser un traitement photodynamique des tissus, ou piloter la modification de biomolécules induite par la lumière. Le défi technique central est que les systèmes biologiques ne réagissent ni à la puissance électrique de la lampe ni à une durée d'exposition globale, mais à l'éclairement énergétique spectrique qui atteint réellement le site d'action, à la dose qui en résulte, et à l'efficacité des photons individuels en fonction de la longueur d'onde. Sans mesure optique traçable, toute observation biologique ne reste que partiellement reproductible.

Comment la technologie évolue-t-elle ?
Sur le plan technique, le principal changement réside dans l'évolution des sources lumineuses utilisées : un abandon des lampes à vapeur de mercure à large bande au profit de LED UV et de sources excimères à bande étroite. Ce changement place la barre plus haut pour la caractérisation photobiologique, car chaque nouvelle combinaison de longueurs d'onde nécessite son propre spectre d'action, son propre profil de sécurité selon IEC 62471, et sa propre dosimétrie. L'attention réglementaire croissante – par exemple les mises à jour de 2022 et 2023 de l'IEC 62471-6 pour les produits à lampe UV et de l'IEC 62471-7 pour le rayonnement visible – est une conséquence directe de cette prolifération des types de sources.
Le passage des lampes à mercure aux LED UV modifie non seulement le coût et l'efficacité, mais aussi les méthodes disponibles : les réseaux de LED fournissant plusieurs longueurs d'onde simultanément et de manière indépendamment contrôlable, les spectres d'action peuvent désormais être déterminés directement et expérimentalement en faisant varier la longueur d'onde d'excitation, plutôt qu'en se fiant à une poignée de raies fixes de lampes. L'établissement de sources far-UVC autour de 222 nm ouvre des applications au-delà de la désinfection classique (voir désinfection UV), car leur pénétration superficielle dans les tissus et leur photochimie distincte – mise en évidence par des rendements quantiques nettement plus élevés pour la photolyse de certaines classes de biomolécules – permettent de nouveaux profils de sécurité et mécanismes d'action (Jing et al., 2024, Water Research). Sur le plan réglementaire, la Convention de Minamata impose l'élimination progressive à l'échelle mondiale des lampes contenant du mercure pour l'éclairage général d'ici 2027 ; les sources UV spécialisées pour la recherche et la désinfection sont pour l'instant traitées par des dérogations distinctes, mais elles subissent elles aussi une pression croissante pour s'adapter (Convention de Minamata sur le mercure – Dérogations). Parallèlement, la CEI et la CIE ont mis à jour leurs normes de sécurité pour les lampes et les systèmes de lampes – IEC 62471-6:2022 pour les produits à lampe UV, y compris les LED UV, et IEC 62471-7:2023 pour les sources émettant majoritairement de la lumière visible – rendant la classification du risque photobiologique des nouvelles sources LED et laser de plus en plus contraignante (IEC Webstore).
Les tailles de marché, les taux de croissance et les sources relatives à ce domaine d'application sont résumés sur la page Évolution du marché de la technologie UV.
Comment le rayonnement optique agit-il sur les systèmes biologiques ?
Les effets biologiques résultent de l'absorption de photons par des molécules spécifiques, les chromophores : les acides nucléiques absorbent préférentiellement dans le domaine UV-C et UV-B, les acides aminés aromatiques et les flavines dans le domaine UV-A et bleu, les porphyrines et autres photosensibilisateurs souvent dans le domaine visible bleu et rouge. Lorsqu'un photon d'énergie appropriée atteint un chromophore, il peut déclencher une transition électronique qui initie une réaction photochimique – une lésion de l'ADN, la génération d'oxygène singulet, ou un changement conformationnel d'une protéine photoréceptrice, par exemple. La probabilité de cette conversion est décrite par le rendement quantique. Comme les spectres d'absorption dépendent de la longueur d'onde, l'efficacité photobiologique d'une source n'est pas déterminée par sa puissance totale, mais par le produit de l'éclairement énergétique spectrique et d'un spectre d'action dépendant de la longueur d'onde qui indique l'efficacité relative de chaque longueur d'onde pour un effet biologique donné (BIPM SI Brochure, Appendix 3).
Quelles technologies et sources lumineuses sont utilisées ?
Une large gamme de technologies de sources est disponible pour l'irradiation contrôlée d'échantillons biologiques, se distinguant par la largeur de bande, la plage de longueurs d'onde, la charge thermique sur l'échantillon et le comportement de vieillissement.
Les lampes à mercure basse pression émettent de façon quasi monochromatique à 253,7 nm et sont traditionnellement utilisées pour les applications UV-C en microbiologie et en désinfection. Les lampes à mercure moyenne et haute pression fournissent un spectre de raies à large bande de l'UV-B au visible et servent, entre autres, de source économique pour les tests de photostabilité. Les lampes à arc au xénon simulent la lumière du soleil (D65/ID65) avec un spectre continu filtré et constituent la source de référence dans les tests de photostabilité pharmaceutique selon ICH Q1B. Les lampes excimères, par exemple à base de chlorure de krypton, émettent de façon quasi monochromatique – à 222 nm par exemple – et gagnent en importance au-delà de la simple désinfection en raison de leur profondeur de pénétration plus faible dans la peau et les yeux et de leur photochimie particulière (Ma et al., 2023). Les LED UV et visibles sont à bande étroite, s'allument presque instantanément, ne contiennent pas de mercure et peuvent être combinées en réseaux couvrant plusieurs longueurs d'onde, ce qui simplifie considérablement l'enregistrement direct de spectres d'action. Les lasers et les diodes laser fournissent une densité de puissance élevée sur une très petite surface et sont utilisés avant tout là où la lumière doit être guidée par fibre optique vers un emplacement défini, comme en optogénétique ou pour un traitement photodynamique focalisé.
| Technologie | Caractéristiques | Avantages / Limites | Application typique |
|---|---|---|---|
| Lampe à mercure basse pression | quasi monochromatique, environ 254 nm | Haute efficacité UV-C, bien établie, faible coût. Teneur en mercure, vieillissement, allumage lent | Inactivation microbiologique |
| Lampe à mercure moyenne/haute pression | spectre de raies à large bande, UV-B au visible | Rendement total élevé. Forte production de chaleur, difficile à filtrer | Tests de photostabilité, polymérisation UV |
| Lampe à arc au xénon (filtrée) | spectre continu, proche de la lumière du jour | Spectre de référence reproductible (D65/ID65). Effort d'étalonnage, forte charge thermique | Tests de photostabilité, recherche sur les écrans solaires |
| Lampe excimère (par ex. KrCl*, 222 nm) | quasi monochromatique, courte longueur d'onde | Pénétration superficielle dans les tissus, sans mercure. Densité de puissance limitée, optique spécialisée requise | Recherche en far-UVC, inactivation en surface |
| LED UV/visible | bande étroite, plusieurs longueurs d'onde combinables | Faible charge thermique, commutation rapide, longue durée de vie. Rendement unitaire inférieur à celui des lampes à décharge | Détermination de spectres d'action, PDT, optogénétique |
| Laser / diode laser | monochromatique, haute densité de puissance, couplable à la fibre | Focalisation précise, apport de lumière ciblé. Coût élevé, exigences de sécurité supplémentaires | Optogénétique, PDT focalisée |
Quelles grandeurs de processus sont déterminantes ?
L'effet photobiologique d'une exposition n'est pas déterminé par une seule grandeur, mais par l'interaction de plusieurs grandeurs physiques qui doivent être enregistrées séparément.
L'éclairement énergétique (en W/m² ou mW/cm²) décrit la puissance rayonnante atteignant une surface et détermine la rapidité avec laquelle une dose est atteinte. La dose, ou exposition énergétique (en J/m² ou mJ/cm²), est l'intégrale temporelle de l'éclairement énergétique et constitue la grandeur généralement corrélée à un effet biologique tel qu'une réduction logarithmique ou un érythème. L'éclairement énergétique spectrique (W/(m²·nm)) est la grandeur de base dès lors que plusieurs longueurs d'onde doivent être comparées, combinées ou pondérées par un spectre d'action – toute grandeur pondérée souhaitée peut en être dérivée, mais pas l'inverse. L'éclairement énergétique effectif, pondéré par le spectre d'action, tient compte du fait que chaque watt de puissance optique n'est pas également efficace ; seule la fraction pondérée par le spectre d'action pertinent compte. Le flux de photons (photons par seconde et par surface, souvent exprimé en µmol·m⁻²·s⁻¹) est déterminant en photobiotechnologie, car les réactions photochimiques sont en fin de compte limitées par les photons, et non par l'énergie. La durée d'irradiation et la température de l'échantillon doivent être enregistrées indépendamment, car des effets thermiques peuvent se superposer aux effets photochimiques sans que cela ne soit perceptible à partir de la seule dose.
Qu'est-ce qui limite le procédé ou provoque des erreurs ?
Une erreur courante consiste à assimiler la puissance électrique de la lampe à la dose optique au site d'action. Entre la lampe et la structure cible se trouvent la distance, l'optique, éventuellement un filtre, la paroi du récipient, un couvercle, le milieu de culture et, en cas d'ensemencement dense, les cellules elles-mêmes ; chacune de ces couches atténue le rayonnement de manière dépendante de la longueur d'onde. Une mesure effectuée au-dessus du récipient d'échantillon décrit donc la source, et non l'exposition réelle de la couche cellulaire.
Il est tout aussi courant de supposer qu'indiquer une durée seule constitue une documentation suffisante. Selon la loi de réciprocité de Bunsen–Roscoe, le produit de l'éclairement énergétique et du temps est constant pour les processus purement photochimiques ; pour les systèmes biologiques, cependant, cette réciprocité ne se vérifie que dans une fenêtre limitée d'intensité et de temps. Les mécanismes de réparation, le réapprovisionnement en oxygène et le transport de masse opèrent selon leurs propres échelles de temps, de sorte que la même dose délivrée à un éclairement énergétique élevé pendant une courte durée peut produire un résultat différent de la même dose à un éclairement énergétique faible pendant une longue durée (aperçu de l'échec de la réciprocité en photobiologie ; étude sur les limites de la réciprocité photobiologique). Quiconque compare des séries d'expériences doit donc indiquer l'éclairement énergétique, le temps et la dose séparément, plutôt que de traiter une exposition plus courte à intensité plus élevée comme une conversion neutre.
Un troisième point, souvent sous-estimé, consiste à confondre les doses issues de la littérature avec des valeurs de procédé directement transférables : une dose d'inactivation de, disons, 10 mJ/cm² rapportée pour une source excimère 222 nm particulière (Ma et al., 2023) est valable pour la géométrie de mesure et la matrice décrites dans cette étude – la transférer à une épaisseur d'échantillon différente, à un milieu trouble ou à une longueur d'onde différente n'est pas permis sans une nouvelle mesure. Enfin, il est souvent sous-estimé que les effets thermiques et photochimiques peuvent se superposer : une source à large bande et haute puissance chauffe l'échantillon de manière mesurable, et une réaction déclenchée purement thermiquement ne peut être séparée de l'effet photochimique que si les deux effets sont saisis isolément (Höhn et al., 2015).
Quelle influence ont le matériau des récipients, le milieu de culture et la géométrie ?
La transmittance spectrique des récipients d'échantillons dépend fortement de la longueur d'onde et constitue, en pratique, l'une des sources d'erreur les plus importantes et pourtant les moins documentées. Les couvercles et plaques standard en polystyrène peuvent atténuer le rayonnement UV-C et UV-B de plusieurs ordres de grandeur de plus que l'UV-A ou la lumière visible, de sorte qu'une expérience simplement documentée comme « irradiation UV » peut en réalité avoir délivré des doses très différentes selon le récipient utilisé. Les milieux de culture eux-mêmes contiennent des composants absorbant l'UV et le bleu – le rouge de phénol comme indicateur de pH, ou la riboflavine, par exemple – qui, selon la loi de Beer-Lambert, atténuent l'éclairement énergétique de façon exponentielle avec l'épaisseur croissante de la couche ; même quelques millimètres de milieu peuvent réduire de manière significative la dose atteignant le fond de la culture. En cas d'ensemencement cellulaire dense, un « effet de filtre interne » s'y ajoute, les cellules proches de la surface recevant une part plus importante de la dose que celles situées plus en profondeur. Dans les microplaques, la formation d'un ménisque à la surface du liquide produit en outre un éclairement énergétique inhomogène et dépendant de la position au sein d'un même puits. Chaque fois que l'un de ces facteurs d'influence est inconnu, l'éclairement énergétique réel doit être mesuré à l'emplacement prévu de l'échantillon plutôt qu'en faisceau libre.
Énergie des photons, rendement quantique et spectres d'action
Deux grandeurs expliquent pourquoi une dose identique ne produit pas automatiquement un effet identique dès que la longueur d'onde change : l'énergie des photons et le rendement quantique.
L'énergie des photons découle de
Ephoton = h · c / λ
avec la constante de Planck h = 6,626 × 10⁻³⁴ J·s, la vitesse de la lumière c = 2,998 × 10⁸ m/s et la longueur d'onde λ. Les longueurs d'onde plus courtes transportent donc davantage d'énergie par photon.
Le rendement quantique Φ décrit le nombre d'événements photochimiques survenant par photon absorbé :
Φ = (nombre d'événements photochimiques) / (nombre de photons absorbés)
Φ n'est pas une constante universelle ; il dépend de la molécule concernée, de son environnement et souvent de la longueur d'onde d'excitation elle-même (IUPAC Gold Book). Une condition préalable à l'application pertinente de ces deux grandeurs est que le rayonnement soit effectivement absorbé – les photons non absorbés ne contribuent pas à la réaction, quelle que soit leur énergie. Deux sources ayant un éclairement énergétique identique mais une longueur d'onde différente produisent en général des effets photobiologiques différents – à la fois parce que la molécule cible absorbe à des degrés différents, et parce que le rendement quantique lui-même peut dépendre de la longueur d'onde.
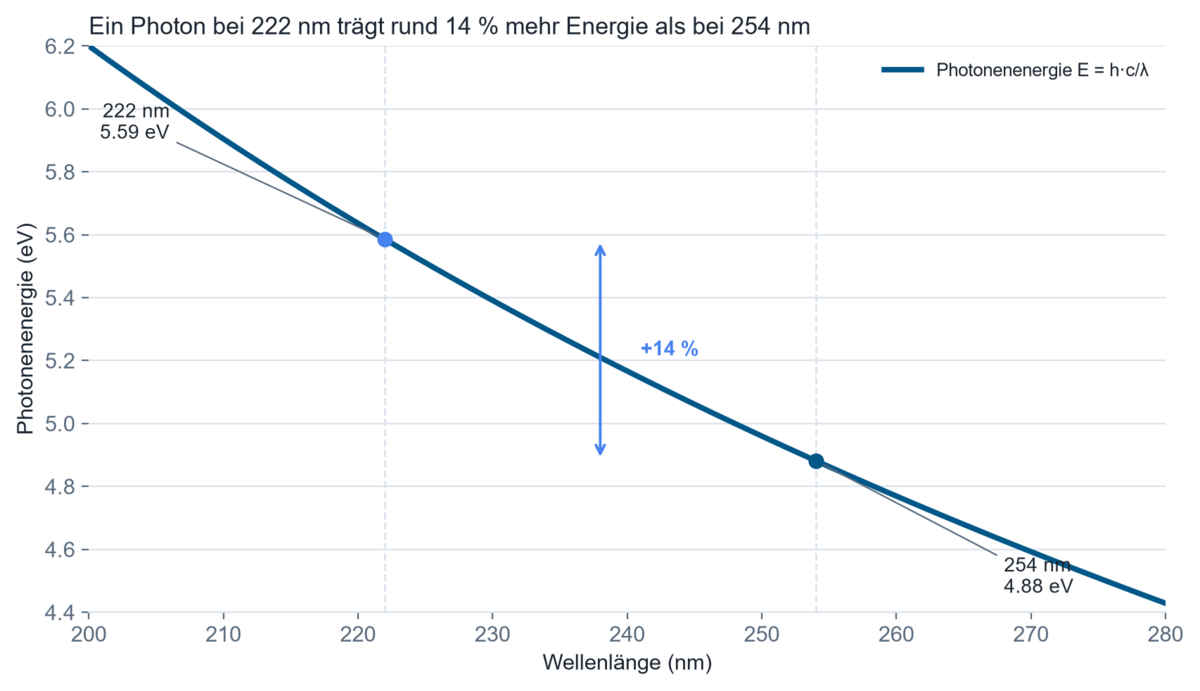
Exemple pratique : comparaison de l'énergie des photons à 222 nm et 254 nm
Question : la recherche en désinfection UV et en photobiologie utilise de plus en plus des sources excimères à 222 nm au lieu des lampes conventionnelles à vapeur de mercure basse pression à 254 nm. Quelle est la différence d'énergie des photons entre ces deux longueurs d'onde, et qu'est-ce que cela signifie pour l'efficacité photochimique ?
Hypothèses : rayonnement monochromatique à λ₁ = 222 nm et λ₂ = 254 nm ; h = 6,626 × 10⁻³⁴ J·s ; c = 2,998 × 10⁸ m/s.
Modèle : Ephoton = h · c / λ
Calcul :
E₁ = (6,626 × 10⁻³⁴ J·s × 2,998 × 10⁸ m/s) / 222 × 10⁻⁹ m ≈ 8,95 × 10⁻¹⁹ J
E₂ = (6,626 × 10⁻³⁴ J·s × 2,998 × 10⁸ m/s) / 254 × 10⁻⁹ m ≈ 7,82 × 10⁻¹⁹ J
Converti en électronvolts (1 eV = 1,602 × 10⁻¹⁹ J) : E₁ ≈ 5,59 eV, E₂ ≈ 4,88 eV.
Résultat : un photon à 222 nm transporte environ 14 % d'énergie de plus qu'un photon à 254 nm.
Interprétation technique : cette différence correspond aux résultats expérimentaux montrant que le rendement quantique de la photolyse des bases nucléiques et des acides aminés à 222 nm est de 4 à 61 fois supérieur à celui observé à 254 nm (Jing et al., 2024, Water Research). En pratique, cela signifie qu'une dose radiométrique égale (J/cm²) à des longueurs d'onde différentes ne produit pas automatiquement un effet biologique comparable – mesurer et indiquer l'éclairement énergétique seul, sans référence à la longueur d'onde, ne suffit pas pour décrire un procédé de manière reproductible ou pour le transférer d'une source à l'autre.
Où l'irradiation optique contrôlée est-elle utilisée ?
Dermatologie et photothérapie. Les UV-B à bande étroite (souvent autour de 311 nm) sont utilisés pour traiter le psoriasis et le vitiligo. La grandeur critique ici est la dose érythémale minimale (DEM) individuelle du patient, qui varie d'une personne à l'autre et est évaluée par rapport au spectre d'action érythémal selon ISO/CIE 17166.
Thérapie photodynamique (PDT). Un photosensibilisateur est excité par une lumière dont la longueur d'onde correspond à ses bandes d'absorption – autour de 405 nm (bande de Soret) pour les lésions superficielles, ou de 630 à 635 nm pour les lésions plus profondes. La grandeur de procédé critique est la profondeur de pénétration, qui est maximale dans ce que l'on appelle la fenêtre thérapeutique, entre environ 600 et 850 nm, où la diffusion et l'absorption par les tissus sont minimales (aperçu de la physique de la PDT, PMC).
Biologie cellulaire et microbiologie. Dans les laboratoires de recherche, des cultures bactériennes et cellulaires sont irradiées dans des conditions définies afin d'étudier les mécanismes de réparation de l'ADN, les taux de mutagenèse ou la phototoxicité, par exemple à l'aide d'une chambre d'irradiation BS-02. L'exigence critique est la reproductibilité de la dose à l'emplacement effectif de l'échantillon sur de nombreuses séries parallèles et journées d'expérimentation (Estévez Castro et al., 2018).
Essais de photostabilité pharmaceutique. Selon l'ICH Q1B, les substances actives et les produits pharmaceutiques finis doivent être exposés à une dose définie de rayonnement UV et de lumière visible (au moins 200 W·h/m² d'UV et 1,2 million de lux-heures de lumière visible) afin d'évaluer la dégradation induite par la lumière. Le facteur critique est la correspondance spectrale exacte de la source d'essai avec le spectre de référence D65/ID65 (EMA/ICH Q1B), traité plus en détail dans Pharma & Photostabilité.
Optogénétique et neurosciences. Des photorécepteurs codés génétiquement tels que la channelrhodopsine (activée autour de 473 nm) ou l'halorhodopsine (inhibée autour de 590 nm) sont pilotés via des LED ou des lasers couplés à des fibres. La grandeur critique est l'éclairement énergétique au niveau de l'extrémité de la fibre ou du tissu cible, et non la puissance de sortie de la source (aperçu des sources lumineuses optogénétiques, PMC).
Photobiotechnologie et génie des bioprocédés. La lumière est de plus en plus utilisée comme outil sélectif en chimie des protéines – par exemple pour la fonctionnalisation de biomolécules par voie photochimique – ainsi que pour éclairer des micro-organismes photosynthétiquement actifs dans des bioréacteurs (Berton & Holland, 2025). Le facteur critique ici est le flux de photons par unité de volume et l'éclairement le plus homogène possible du volume du réacteur.
Cosmétique et recherche sur les protections solaires. Les essais in vitro de l'efficacité des filtres UV et des photosensibilisateurs utilisent une irradiation pondérée par l'érythème ou la phototoxicité. Le facteur critique est la proximité entre le spectre d'essai et le spectre UV solaire, certaines combinaisons de principes actifs pouvant être fortement sélectives en longueur d'onde.
Comment mesure-t-on l'éclairement énergétique sur les microplaques, les sources pulsées et les extrémités de fibre ?
Pour le criblage hautement parallèle dans les microplaques, des réseaux de LED à longueurs d'onde et positions adressables individuellement sont utilisés afin de compenser l'inhomogénéité spatiale en étalonnant chaque puits.
Pour les sources pulsées telles que les lampes flash au xénon, une mesure purement intégrée dans le temps est insuffisante lorsque la forme de l'impulsion elle-même est photobiologiquement pertinente ; des méthodes de mesure résolues dans le temps sont alors nécessaires.
Pour les échantillons thermosensibles – échantillons de tissus vivants ou enzymes sensibles à la température, par exemple – des supports d'échantillons refroidis avec surveillance continue de la température sont combinés afin de séparer nettement les effets photochimiques des effets thermiques.
Pour les applications in vivo telles que l'optogénétique par fibre optique ou la PDT interstitielle, la mesure en faisceau libre est fondamentalement inadaptée ; l'éclairement énergétique doit plutôt être estimé à l'extrémité distale de la fibre ou via un modèle tissulaire validé.
Quelles grandeurs doivent être mesurées ou surveillées ?
Le point de départ de tout plan de mesure est de déterminer quelle grandeur importe réellement pour le critère biologique concerné – et non quel instrument se trouve disponible. Si une seule longueur d'onde bien caractérisée est utilisée et que sa pondération selon le spectre d'action est déjà connue, un radiomètre à large bande tel que le RMD Pro, associé à une combinaison de filtres adaptée à ce spectre d'action, peut suffire (voir Choix des capteurs UV pour le contexte du choix du capteur). Dès que plusieurs longueurs d'onde doivent être comparées, combinées ou nouvellement évaluées, ou lorsqu'une source inconnue, à large bande et sujette au vieillissement est en jeu, une mesure spectrique au moyen d'un spectroradiomètre tel que le SR900 est nécessaire, car aucune information spectrale ne peut être reconstituée par la suite à partir d'une lecture intégrale.
Les mesures doivent toujours être effectuées à l'emplacement réel de l'échantillon – au niveau de la couche cellulaire, et non dans le faisceau libre au-dessus du couvercle du récipient – car sinon l'atténuation due au matériau du récipient et au milieu est systématiquement sous-estimée. Les incertitudes de mesure pertinentes proviennent de la discordance spectrique entre la réponse du capteur et le spectre réel de la source, de la dépendance angulaire de la réponse du capteur (erreur de cosinus) en cas d'incidence non parallèle, ainsi que de l'incertitude d'étalonnage de l'étalon de référence utilisé. Des mesures à résolution spatiale deviennent nécessaires dès qu'un échantillon est plus grand que la zone uniformément éclairée par la source – des plaques multipuits sous un même réseau de LED, par exemple. La résolution temporelle devient pertinente pour les sources pulsées ou dérivantes dont la puissance varie au cours de la période d'exposition.
Dans les processus d'irradiation automatisés – des séries d'expériences comportant de nombreux échantillons sur plusieurs semaines ou mois, par exemple – un réglage unique de la puissance de la lampe et de la durée d'exposition ne suffit pas, car l'éclairement énergétique réel évolue continuellement en raison du vieillissement de la lampe, de l'encrassement de l'optique et de la dérive thermique. Le fonctionnement à dose contrôlée – tel qu'il est mis en œuvre par le contrôle de dose UV-MAT dans une chambre d'irradiation – mesure en continu l'éclairement énergétique au moyen d'un capteur étalonné et met automatiquement fin à l'exposition une fois la dose cible atteinte, plutôt que de s'arrêter après une durée fixe. Cela découple la dose réellement délivrée du vieillissement de la source et garantit la comparabilité des séries d'expériences sur de longues périodes.
Dans les environnements réglementés – laboratoires d'essai proches des exigences GMP ou laboratoires d'étalonnage accrédités selon la DIN EN ISO/IEC 17025:2018-03, par exemple – un enregistrement traçable et documenté de chaque dose individuelle revêt en outre une importance particulière, afin que les comparaisons de lots ou d'expériences restent vérifiables par la suite ; la traçabilité des capteurs utilisés est assurée par le laboratoire d'étalonnage accrédité.
En pratique, l'éclairement énergétique spectrique est généralement mesuré à l'aide d'un spectroradiomètre étalonné couvrant en une seule mesure l'UV, la lumière visible et, le cas échéant, le proche infrarouge. Pour les mesures de routine sur des sources connues, on utilise des radiomètres équipés de capteurs pondérés selon un spectre d'action, dont la réponse spectrique a déjà été façonnée pour correspondre à un spectre d'action défini. Pour des expositions définies et à dose contrôlée de cultures cellulaires et bactériennes, on utilise des chambres d'irradiation telles que l'UV-MAT, dotée de canaux spectriques commutables indépendamment, dont le contrôle de dose repose sur l'éclairement énergétique réellement mesuré – et non simplement nominal.
Que montrent les recherches publiées ?
Sépare expérimentalement l'effet purement thermique de l'effet photochimique d'une exposition – exactement le type de chevauchement que les expositions plus longues masquent souvent.
Actual isothermal effects of water-filtered infrared A-irradiation
Höhn, Annika, et al. « Actual isothermal effects of water-filtered infrared A-irradiation. » Photochemistry and Photobiology 91.4 (2015) : 887–894.
Montre, à l'aide de données d'expression génique, que l'irradiation à 222 nm photolyse directement les enzymes de réparation, et fournit le rendement quantique nettement plus élevé pour la photolyse des nucléobases et des acides aminés à 222 nm par rapport à 254 nm, qui sous-tend l'exemple détaillé de cette page.
Suppression of photoreactivation of E. coli by excimer far-UV light (222 nm) via damage to multiple targets
Jing, Zi-Bo, et al. « Suppression of photoreactivation of E. coli by excimer far-UV light (222 nm) via damage to multiple targets. » Water Research 255 (2024) : 121533.
Caractérise la cinétique d'inactivation de plusieurs agents pathogènes et substituts sous irradiation excimère à 222 nm, et fournit l'ordre de grandeur de dose pour la désinfection par UVC lointain cité sur cette page.
UV Inactivation of Common Pathogens and Surrogates Under 222 nm Irradiation from KrCl* Excimer Lamps
Ma, Ben, et al. « UV Inactivation of Common Pathogens and Surrogates Under 222 nm Irradiation from KrCl* Excimer Lamps. » Photochemistry and Photobiology (2023).
Que montrent les publications de recherche de nos clients ?
Les travaux suivants d'utilisateurs illustrent l'étendue du domaine – des réactions cutanées aux mécanismes de réparation, jusqu'à la chimie des protéines pilotée par la lumière.
Étudie comment l'exposition aux UV modifie la réponse inflammatoire des cellules immunitaires cutanées.
Influence of UV irradiation on the skin-immune cell inflammatory response
Miceli, Rebecca, et al. "Influence of UV irradiation on the skin-immune cell inflammatory response." Research Square (2026).
Sélectionne des mélanges de composés d'origine végétale pour la formulation de crèmes solaires en fonction de leur efficacité et de leur cytotoxicité – en traitant l'effet protecteur comme une grandeur pondérée spectralement.
Rational Selection of Phytochemical Mixtures for Sunscreen Development Based on in vitro Efficacy and Cytotoxicity Profiles
Martínez, Silvia Ximena Barrios, et al. "Rational Selection of Phytochemical Mixtures for Sunscreen Development Based on in vitro Efficacy and Cytotoxicity Profiles." Revista Brasileira de Farmacognosia 36.1 (2026).
Compare la radiotoxicité et la phototoxicité dans les mêmes lignées cellulaires et évalue l'effet potentialisateur de plusieurs photosensibilisateurs, irradiés à l'aide d'une chambre d'irradiation BS-04.
Comparison of Radio- and Phototoxicity in Association with an Enhancing Effect of the Photosensitizers Psoralen, Trioxsalen and Ortho-Iodo-Hoechst33258
Tietze, Katja, et al. "Comparison of Radio- and Phototoxicity in Association with an Enhancing Effect of the Photosensitizers Psoralen, Trioxsalen and Ortho-Iodo-Hoechst33258 on FaDu, PC-3, 4T1 and B16-F10 Cells." Biomedicines 13.1 (2024): 73.
Montre, chez des mutants déficients en réparation, à quel point la réparation cellulaire détermine le résultat d'une exposition aux UV.
Influence of uvrA, recJ and recN gene mutations on nucleoid reorganization in UV-treated Escherichia coli cells
Estévez Castro, Carlos Felipe, Jorge Humberto Serment-Guerrero, and Jorge Luis Fuentes. "Influence of uvrA, recJ and recN gene mutations on nucleoid reorganization in UV-treated Escherichia coli cells." FEMS Microbiology Letters 365.11 (2018): fny110.
Utilise la lumière comme outil sélectif en chimie des protéines plutôt que comme facteur de stress.
Light-induced chemistry for protein functionalisation
Berton, Cesare, and Jason P. Holland. "Light-induced chemistry for protein functionalisation." Chemical Communications (2025).
Dans les domaines de la photobiologie, de la biotechnologie et de la médecine, les clients d'Opsytec ont publié au total 34 travaux ; ils sont répertoriés sous Publications par clients – par thème.
Contexte technique et sources complémentaires
- ISO/CIE 17166:2019 – Spectre d'action de référence de l'érythème et dose érythémale standard (iso.org)
- IEC 62471 (série) – Sécurité photobiologique des lampes et des appareils utilisant des lampes, y compris IEC 62471-6:2022 (produits à lampe UV) et IEC 62471-7:2023 (rayonnement visible) (webstore.iec.ch)
- DIN 5031-10:2018 – Physique du rayonnement optique et technique de l'éclairage, partie 10 : rayonnement photobiologiquement efficace, grandeurs, symboles et effets (dinmedia.de)
- ICH Q1B – Essais de photostabilité des nouvelles substances actives et des produits médicamenteux (ema.europa.eu)
- BIPM, Brochure sur le SI, Annexe 3 – Unités pour les grandeurs photochimiques et photobiologiques (bipm.org)
- ISO 21348:2007 – Définitions des catégories spectrales de l'éclairement solaire (limites UV-A/-B/-C) (iso.org)
FAQ sur la photobiologie et la biotechnologie
Comment fonctionne l'effet biologique du rayonnement UV ?
Les photons UV sont absorbés par des chromophores tels que les bases de l'ADN ou les protéines et déclenchent des réactions photochimiques – des dommages à l'ADN ou des modifications structurelles, par exemple. L'efficacité dépend fortement de la longueur d'onde, car chaque chromophore possède son propre spectre d'absorption. En l'absence d'absorption, aucun effet ne se produit, quelle que soit la puissance appliquée.
Quelle longueur d'onde convient pour la thérapie photodynamique ?
La longueur d'onde est choisie de manière à correspondre au spectre d'absorption du photosensibilisateur utilisé. La lumière bleue autour de 405 nm convient aux lésions superficielles, la lumière rouge autour de 630–635 nm convient aux régions plus profondes car elle pénètre davantage les tissus. Le choix résulte donc d'un compromis entre l'efficacité d'absorption et la profondeur de pénétration.
Quelle dose est nécessaire pour l'inactivation microbienne ?
La dose nécessaire dépend de la longueur d'onde et de l'organisme. Pour les sources excimères à 222 nm, les études rapportent des doses d'environ 10 mJ/cm² pour une réduction de 4 log de nombreuses bactéries et virus ; les sources à 254 nm nécessitent souvent des valeurs comparables, bien qu'avec des effets différents sur les tissus. Les valeurs de la littérature s'appliquent toujours à la géométrie de mesure spécifique et ne peuvent pas être transposées sans vérification.
Quelle est la différence entre l'éclairement énergétique et la dose ?
L'éclairement énergétique (W/m²) décrit la puissance instantanée par unité de surface ; la dose (J/m²) en est l'intégrale temporelle. C'est généralement la dose qui est corrélée à un effet biologique, tandis que l'éclairement énergétique détermine la vitesse à laquelle cette dose est atteinte. Les deux grandeurs doivent donc être documentées séparément. La manière dont l'éclairement énergétique, la dose et la fluence diffèrent formellement est exposée dans l'aperçu des grandeurs radiométriques.
Pourquoi une dose identique à des longueurs d'onde différentes produit-elle des effets différents ?
Parce que l'énergie des photons et le rendement quantique dépendent tous deux de la longueur d'onde. Les longueurs d'onde plus courtes transportent davantage d'énergie par photon et peuvent activer différentes voies de réaction photochimique, conduisant à des rendements quantiques nettement différents. Une valeur de dose seule, sans référence à la longueur d'onde, est donc insuffisante pour comparer des effets.
Comment mesure-t-on l'éclairement énergétique réel d'une culture cellulaire ?
Idéalement à l'emplacement réel de l'échantillon, aussi près que possible de la couche cellulaire, et non dans le faisceau libre au-dessus du récipient. Le matériau du récipient, le couvercle et le milieu de culture atténuent le rayonnement de manière dépendante de la longueur d'onde, parfois de plusieurs ordres de grandeur. Une mesure effectuée en dehors de ces absorbeurs sous-estime systématiquement l'atténuation réelle.
Quand une mesure à large bande suffit-elle, et quand une mesure spectrale est-elle nécessaire ?
Une mesure à large bande avec un capteur adapté au spectre d'action suffit lorsqu'une seule longueur d'onde bien caractérisée est utilisée. Dès que plusieurs longueurs d'onde doivent être comparées, combinées ou nouvellement évaluées, ou que la source est inconnue ou à large bande, une mesure spectrale au moyen d'un spectroradiomètre est nécessaire.
Quel rôle joue la température dans les expériences photobiologiques ?
Les sources de forte puissance échauffent l'échantillon de manière mesurable, et des réactions déclenchées thermiquement peuvent se superposer à l'effet photochimique ou l'amplifier. Une séparation nette nécessite soit un support d'échantillon refroidi, soit une mesure témoin isotherme parallèle. Sans contrôle de la température, un effet observé ne peut pas être attribué de manière fiable à l'irradiation seule.
Domaines d'application connexes
La photobiologie et la biotechnologie sont limitrophes de plusieurs domaines voisins : la photothérapie médicale applique les mêmes principes photobiologiques au traitement de patients prescrit par un médecin, la photostabilité pharmaceutique teste la sensibilité à la lumière de produits finis plutôt qu'un effet biologique, et la sécurité au travail et la sécurité photobiologique traitent des mêmes grandeurs physiques pour une exposition non intentionnelle plutôt que délibérée. Sont également voisines la désinfection UV en tant qu'application spécialisée d'inactivation, et les Plantes, Agriculture & Technologie alimentaire pour l'effet photobiologique sur le matériel végétal. L'aspect physico-chimique de l'excitation, de la sensibilisation et du rendement quantique est exposé dans la rubrique photochimie.
Auteur : Dr Mark Paravia
Le Dr-Ing. Mark Paravia est le directeur général d'Opsytec Dr. Gröbel GmbH à Ettlingen et dirige le laboratoire d'étalonnage accrédité. Après ses recherches sur les décharges excimères au xénon pulsées à l'Institut de technologie de l'éclairage du KIT, il se consacre aujourd'hui à la technique de mesure du rayonnement optique. Il est vice-président du comité de normalisation DIN FNL 7 « Rayonnement optique » et membre du groupe de projet DVGW sur la désinfection UV.
Vous ne savez pas quelle dose atteint réellement une couche cellulaire à travers un couvercle, le milieu et la paroi du récipient
Vous ne savez pas quelle dose atteint réellement une couche cellulaire à travers un couvercle, le milieu et la paroi du récipient ? Une évaluation photobiologique fiable commence par une mesure effectuée à l'emplacement réel de l'échantillon – et non dans le faisceau libre de la lampe. Pour une irradiation définie et à dose contrôlée des cultures cellulaires et bactériennes, le contrôle de la dose UV-MAT est particulièrement adapté ; pour la caractérisation spectrale de sources inconnues ou combinées, le spectroradiomètre SR900 ; et pour la surveillance de routine de sources connues, le radiomètre RMD Pro. L'étalonnage et la traçabilité métrologique des capteurs utilisés sont assurés par le laboratoire d'étalonnage accrédité selon la norme ISO/IEC 17025. Contactez-nous au sujet de votre tâche de mesure.
