


Fotobiologi og bioteknologi: kontrolleret optisk bestråling af celler og væv
Fotobiologi undersøger, hvordan optisk stråling – fra UV-C til det nære infrarøde område – interagerer med biologisk materiale: med DNA, proteiner, fotosensibilisatorer, fotoreceptorer og cellestrukturer. Bioteknologi anvender denne viden som et bevidst værktøj – til at inaktivere mikroorganismer, styre cellulære signalveje, udføre fotodynamisk behandling af væv eller drive den lysmedierede modifikation af biomolekyler. Den centrale tekniske udfordring er, at biologiske systemer ikke reagerer på lampens elektriske effekt eller en generel eksponeringstid, men på den spektrale irradians, der rent faktisk når frem til virkningsstedet, den resulterende dosis og de enkelte fotoners bølgelængdeafhængige effektivitet. Uden sporbar optisk måling forbliver enhver biologisk observation kun delvist reproducerbar.

Hvordan udvikler teknologien sig?
Teknisk set er det største skifte en ændring i de anvendte lyskilder: væk fra bredbånds-kviksølvdamplamper og over mod smalbånds-UV-LED'er og excimerkilder. Dette skifte hæver kravene til fotobiologisk karakterisering, fordi hver ny bølgelængdekombination kræver sit eget aktionsspektrum, sin egen sikkerhedsprofil under IEC 62471 og sin egen dosimetri. Den stigende regulatoriske opmærksomhed – for eksempel 2022- og 2023-opdateringerne af IEC 62471-6 for UV-lampeprodukter og IEC 62471-7 for synlig stråling – er en direkte konsekvens af denne udbredelse af kildetyper.
Skiftet fra kviksølvlamper til UV-LED'er ændrer ikke kun omkostninger og effektivitet, men også de metoder, der er til rådighed: fordi LED-arrays leverer flere bølgelængder samtidigt og uafhængigt styrbart, kan aktionsspektre nu bestemmes direkte og eksperimentelt ved at variere excitationsbølgelængden, i stedet for at være afhængig af en håndfuld fastlagte lampelinjer. Etableringen af far-UVC-kilder omkring 222 nm åbner for anvendelser ud over klassisk desinfektion (se UV-desinfektion), fordi deres begrænsede indtrængning i væv og deres særegne fotokemi – dokumenteret ved markant højere kvanteudbytter for fotolyse af visse klasser af biomolekyler – muliggør nye sikkerhedsprofiler og virkningsmekanismer (Jing et al., 2024, Water Research). På det regulatoriske område driver Minamata-konventionen den globale udfasning af kviksølvholdige lamper til almen belysning senest i 2027; specialiserede UV-kilder til forskning og desinfektion er hidtil blevet håndteret via separate undtagelser, men er også under stigende pres for at tilpasse sig (Minamata Convention on Mercury – Exemptions). Samtidig har IEC og CIE opdateret deres sikkerhedsstandarder for lamper og lampesystemer – IEC 62471-6:2022 for UV-lampeprodukter inklusive UV-LED'er og IEC 62471-7:2023 for kilder, der primært udsender synligt lys – hvilket gør fotobiologisk risikoklassificering af nye LED- og laserkilder stadig mere bindende (IEC Webstore).
Markedsstørrelser, vækstrater og kilder for dette anvendelsesområde er sammenfattet på siden Markedsudvikling for UV-teknologi.
Hvordan påvirker optisk stråling biologiske systemer?
Biologiske effekter opstår fra absorptionen af fotoner af specifikke molekyler, kromoforerne: nukleinsyrer absorberer fortrinsvis i UV-C- og UV-B-området, aromatiske aminosyrer og flaviner i UV-A- og blåt område, porphyriner og andre fotosensibilisatorer ofte i det blå og røde synlige område. Når en foton med passende energi træffer en kromofor, kan den udløse en elektronisk overgang, der starter en fotokemisk reaktion – f.eks. DNA-skade, singlet-oxygengenerering eller en konformationsændring i et fotoreceptorprotein. Sandsynligheden for denne omdannelse beskrives af kvanteudbyttet. Fordi absorptionsspektre er bølgelængdeafhængige, bestemmes en kildes fotobiologiske effektivitet ikke af dens totale effekt, men af produktet af spektral irradians og et bølgelængdeafhængigt aktionsspektrum, der angiver den relative effektivitet af hver bølgelængde for et givent biologisk endpoint (BIPM SI Brochure, Appendix 3).
Hvilke teknologier og lyskilder anvendes?
Der findes en bred vifte af kildeteknologier til kontrolleret bestråling af biologiske prøver, som adskiller sig i bandbredde, bølgelængdeområde, termisk belastning af prøven og ældningsadfærd.
Kviksølvlavtryklamper udsender næsten monokromatisk lys ved 253,7 nm og anvendes traditionelt til UV-C-applikationer inden for mikrobiologi og desinfektion. Kviksølvmellemtryk- og højtrykslamper afgiver et bredbåndet linjespektrum fra UV-B til synligt lys og fungerer blandt andet som en billig kilde til fotostabilitetstest. Xenonbuelamper simulerer sollys (D65/ID65) med et filtreret, kontinuerligt spektrum og er referencekilden i farmaceutisk fotostabilitetstest under ICH Q1B. Excimerlamper, for eksempel baseret på krypton-chlorid, udsender kvasi-monokromatisk lys – for eksempel ved 222 nm – og bliver mere relevante uden for ren desinfektion på grund af deres lavere indtrængningsdybde i hud og øjne og deres særlige fotokemi (Ma et al., 2023). UV- og synlige LED'er er smalbåndede, tændes næsten øjeblikkeligt, indeholder ikke kviksølv og kan kombineres i arrays, der spænder over flere bølgelængder, hvilket i høj grad forenkler direkte registrering af aktionsspektre. Lasere og laserdioder afgiver høj effektdensitet på et meget lille areal og anvendes især, hvor lys skal føres via fiberoptik til et defineret sted, som i optogenetik eller fokuseret fotodynamisk behandling.
| Teknologi | Kendetegn | Fordele/begrænsninger | Typisk anvendelse |
|---|---|---|---|
| Kviksølvlavtryklampe | kvasi-monokromatisk, ca. 254 nm | Høj UV-C-effektivitet, velafprøvet, lav pris. Kviksølvindhold, ældning, langsom tænding | Mikrobiologisk inaktivering |
| Kviksølvmellemtryk-/højtrykslampe | bredbåndet linjespektrum, UV-B til synligt | Høj totaleffekt. Stor varmeudvikling, svær at filtrere | Fotostabilitetstest, UV-hærdning |
| Xenonbuelampe (filtreret) | kontinuerligt, dagslignende spektrum | Reproducerbart referencespektrum (D65/ID65). Kalibreringsindsats, høj varmebelastning | Fotostabilitetstest, solcremeforskning |
| Excimerlampe (f.eks. KrCl*, 222 nm) | kvasi-monokromatisk, kortbølget | Lav indtrængningsdybde i væv, kviksølvfri. Begrænset effektdensitet, kræver specialoptik | Far-UVC-forskning, inaktivering nær overflade |
| UV-/synlig LED | smalbåndet, flere bølgelængder kan kombineres | Lav termisk belastning, hurtig tænding, lang levetid. Lavere enkeltenhedseffekt end udladningslamper | Bestemmelse af aktionsspektre, PDT, optogenetik |
| Laser/laserdiode | monokromatisk, høj effektdensitet, fiberkoblet | Præcis fokusering, målrettet lyslevering. Høj pris, sikkerhedsmæssig ekstra indsats | Optogenetik, fokuseret PDT |
Hvilke procesparametre er afgørende
Den fotobiologiske effekt af en eksponering bestemmes ikke af en enkelt størrelse, men af samspillet mellem flere fysiske størrelser, som skal registreres separat.
Irradians (i W/m² eller mW/cm²) beskriver den strålingseffekt, der rammer en flade, og afgør, hvor hurtigt en dosis nås. Dosis, eller stråleeksponering (i J/m² eller mJ/cm²), er tidsintegralet af irradiansen og er den størrelse, der som regel korreleres med en biologisk effekt, f.eks. en log-reduktion eller en erytem. Spektral irradians (W/(m²·nm)) er grundstørrelsen, når flere bølgelængder skal sammenlignes, kombineres eller vægtes med et aktionsspektrum – enhver ønsket vægtet størrelse kan udledes heraf, men ikke omvendt. Effektiv, aktionsspektrum-vægtet irradians tager højde for, at ikke hver watt optisk effekt er lige effektiv; kun den andel, der vægtes med det relevante aktionsspektrum, tæller. Fotonflux (fotoner pr. sekund og areal, ofte angivet som µmol·m⁻²·s⁻¹) er vigtig i fotobioteknologi, fordi fotokemiske reaktioner i sidste ende er fotonbegrænsede og ikke energibegrænsede. Bestrålingstid og prøvetemperatur skal registreres uafhængigt af hinanden, da termiske effekter kan overlejre fotokemiske effekter uden at det fremgår af dosis alene.
Hvad begrænser processen eller forårsager fejl?
En almindelig fejl er at ligestille lampens elektriske effekt med den optiske dosis på virkningsstedet. Mellem lampen og målstrukturen ligger afstand, optik, eventuelt et filter, beholdervæggen, et låg, dyrkningsmediet og – ved tæt udsæd – selve cellerne; hvert af disse lag dæmper strålingen bølgelængdeafhængigt. En måling taget over prøvebeholderen beskriver derfor kilden, ikke den faktiske eksponering af cellelaget.
Lige så almindelig er antagelsen om, at en angivelse af tid alene er tilstrækkelig dokumentation. Ifølge Bunsen-Roscoe-reciprocitetsloven er produktet af irradians og tid konstant for rent fotokemiske processer; for biologiske systemer gælder denne reciprocitet dog kun inden for et begrænset intensitets- og tidsvindue. Reparationsmekanismer, ilttilførsel og massetransport foregår på deres egne tidsskalaer, så den samme dosis givet ved høj irradians over kort tid kan give et andet resultat end den samme dosis ved lav irradians over lang tid (oversigt over svigt af reciprocitet i fotobiologi; studie om fotobiologiske reciprocitetsgrænser). Enhver, der sammenligner forsøgsserier, bør derfor angive irradians, tid og dosis hver for sig i stedet for at behandle en kortere eksponering ved højere intensitet som en neutral omregning.
Et tredje, ofte undervurderet punkt er at forveksle litteraturdoser med direkte overførbare procesværdier: en inaktiveringsdosis på f.eks. 10 mJ/cm², som er rapporteret for en bestemt 222 nm excimerkilde (Ma et al., 2023), gælder for den dér beskrevne målegeometri og matrix – at overføre den til en anden prøvetykkelse, et uklart medium eller en anden bølgelængde er ikke tilladt uden en ny måling. Endelig undervurderes det ofte, at termiske og fotokemiske effekter kan overlappe: en højeffekts, bredbåndet kilde opvarmer prøven målbart, og en rent termisk udløst reaktion kan kun adskilles fra den fotokemiske effekt, hvis begge effekter registreres isoleret (Höhn et al., 2015).
Hvilken indflydelse har beholdermateriale, kulturmedium og geometri?
Den spektrale transmittans af prøvebeholdere er stærkt bølgelængdeafhængig og er i praksis en af de største, men mindst dokumenterede fejlkilder. Standard polystyrenlåg og -plader kan dæmpe UV-C- og UV-B-stråling flere størrelsesordener mere end UV-A eller synligt lys, så et eksperiment, der blot er dokumenteret som "UV-bestråling", kan i realiteten have leveret meget forskellige prøvedoser afhængigt af den anvendte beholder. Kulturmedierne selv indeholder UV- og blåabsorberende komponenter – fenolrød som pH-indikator eller riboflavin, for eksempel – som i henhold til Beer-Lambert-loven dæmper irradiansen eksponentielt med stigende lagtykkelse; selv få millimeter medium kan reducere den dosis, der når bunden af kulturen, mærkbart. Ved tæt celleudsæd tilføjer en "indre filtereffekt" hertil, hvor celler nær overfladen modtager en større andel af dosen end de, der ligger dybere. I mikroplader medfører meniskdannelse ved væskeoverfladen desuden en inhomogen, positionsafhængig irradians inden for samme brønd. Hvor en af disse påvirkningsfaktorer er ukendt, bør den faktiske irradians måles på den tilsigtede prøveplacering i stedet for i den frie stråle.
Fotonenergi, kvanteudbytte og aktionsspektre
To størrelser forklarer, hvorfor en identisk dosis ikke automatisk giver en identisk effekt, når bølgelængden ændrer sig: fotonenergi og kvanteudbytte.
Fotonenergi følger af
Ephoton = h · c / λ
med Plancks konstant h = 6,626 × 10⁻³⁴ J·s, lyshastigheden c = 2,998 × 10⁸ m/s og bølgelængden λ. Kortere bølgelængder bærer derfor mere energi pr. foton.
Kvanteudbyttet Φ beskriver, hvor mange fotokemiske hændelser der forekommer pr. absorberet foton:
Φ = (antal fotokemiske hændelser) / (antal absorberede fotoner)
Φ er ikke en naturkonstant; det afhænger af det specifikke molekyle, dets omgivelser og ofte af selve excitationsbølgelængden (IUPAC Gold Book). En forudsætning for at anvende begge størrelser meningsfuldt er, at strålingen faktisk absorberes – fotoner, der ikke absorberes, bidrager ikke til reaktionen, uanset deres energi. To kilder med identisk irradians, men forskellig bølgelængde, giver typisk forskellige fotobiologiske effekter – både fordi målmolekylet absorberer i forskellig grad, og fordi kvanteudbyttet selv kan være bølgelængdeafhængigt.
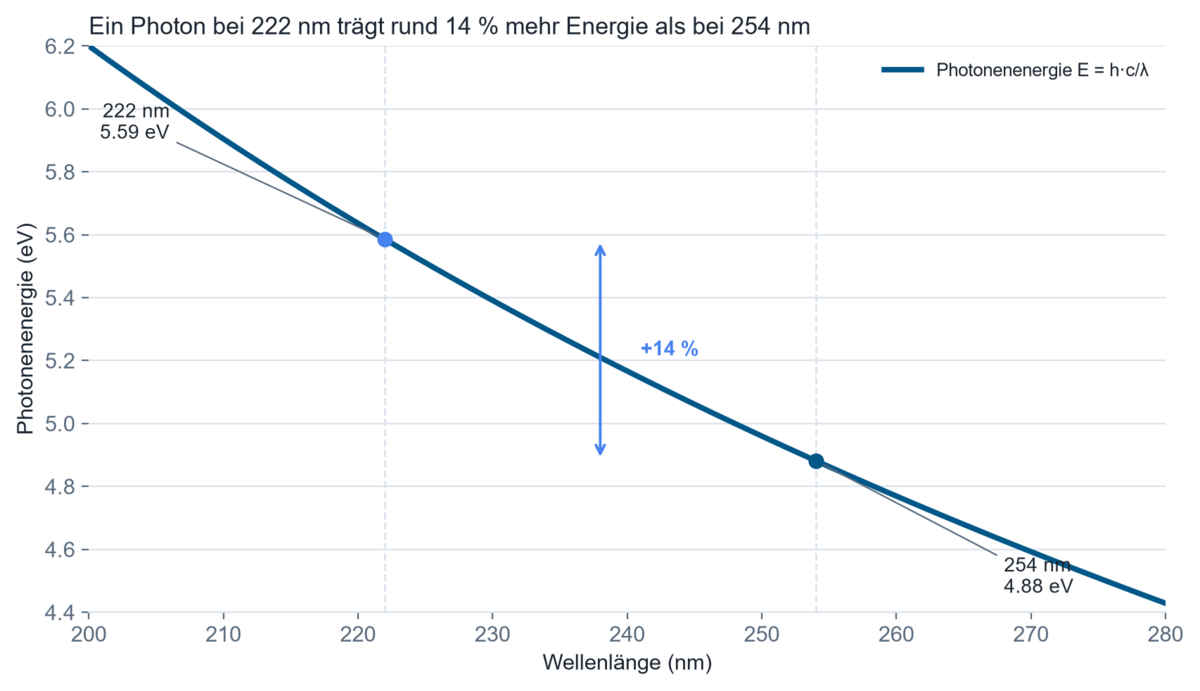
Regneeksempel: sammenligning af fotonenergi ved 222 nm og 254 nm
Spørgsmål: UV-desinfektion og fotobiologisk forskning anvender i stigende grad excimerkilder ved 222 nm i stedet for konventionelle lavtryks-kviksølvlamper ved 254 nm. Hvordan adskiller fotonenergien sig mellem de to bølgelængder, og hvad betyder det for den fotokemiske effektivitet?
Antagelser: monokromatisk stråling ved λ₁ = 222 nm og λ₂ = 254 nm; h = 6,626 × 10⁻³⁴ J·s; c = 2,998 × 10⁸ m/s.
Model: Ephoton = h · c / λ
Beregning:
E₁ = (6,626 × 10⁻³⁴ J·s × 2,998 × 10⁸ m/s) / 222 × 10⁻⁹ m ≈ 8,95 × 10⁻¹⁹ J
E₂ = (6,626 × 10⁻³⁴ J·s × 2,998 × 10⁸ m/s) / 254 × 10⁻⁹ m ≈ 7,82 × 10⁻¹⁹ J
Omregnet til elektronvolt (1 eV = 1,602 × 10⁻¹⁹ J): E₁ ≈ 5,59 eV, E₂ ≈ 4,88 eV.
Resultat: en foton ved 222 nm har cirka 14 procent mere energi end en foton ved 254 nm.
Teknisk fortolkning: denne forskel stemmer overens med eksperimentelle fund om, at kvanteudbyttet for fotolyse af nukleobaser og aminosyrer ved 222 nm er 4 til 61 gange højere end ved 254 nm (Jing et al., 2024, Water Research). I praksis betyder det, at en ens radiometrisk dosis (J/cm²) ved forskellige bølgelængder ikke automatisk giver en sammenlignelig biologisk effekt – at måle og angive irradians alene, uden en bølgelængdereference, er ikke nok til at beskrive en proces reproducerbart eller overføre den mellem kilder.
Hvor anvendes kontrolleret optisk bestråling?
Dermatologi og fototerapi. Narrowband UV-B (ofte omkring 311 nm) anvendes til behandling af psoriasis og vitiligo. Den kritiske størrelse her er patientens individuelle minimale erytemdosis (MED), som varierer fra person til person og vurderes i forhold til erytemets virkningsspektrum i henhold til ISO/CIE 17166.
Fotodynamisk terapi (PDT). En fotosensibilisator exciteres af lys, hvis bølgelængde matcher dens absorptionsbånd - omkring 405 nm (Soret-båndet) til overfladiske læsioner eller 630-635 nm til dybereliggende. Den kritiske processtørrelse er indtrængningsdybden, som er størst i det såkaldte terapeutiske vindue mellem ca. 600 og 850 nm, hvor spredning og absorption i vævet er minimal (oversigt over PDT-fysik, PMC).
Celle- og mikrobiologi. I forskningslaboratorier bestråles bakterie- og cellekulturer under definerede betingelser for at studere DNA-reparationsmekanismer, mutagenesehyppigheder eller fototoksicitet, for eksempel ved hjælp af et BS-02 bestrålingskammer. Det kritiske krav er reproducerbarhed af dosis ved den faktiske prøveposition på tværs af mange parallelle forsøg og forsøgsdage (Estévez Castro et al., 2018).
Farmaceutisk fotostabilitetstestning. I henhold til ICH Q1B skal aktive stoffer og færdige lægemidler udsættes for en defineret dosis af UV- og synligt lys (mindst 200 W·h/m² UV og 1,2 millioner lux timer synligt lys) for at vurdere lysinduceret nedbrydning. Det kritiske faktor er den nøjagtige spektrale overensstemmelse mellem testkilden og D65/ID65-referencespektret (EMA/ICH Q1B), som beskrives mere indgående under Pharma & Photostability.
Optogenetik og neurovidenskab. Genetisk kodede fotoreceptorer som channelrhodopsin (aktiveret omkring 473 nm) eller halorhodopsin (hæmmet omkring 590 nm) styres via fiberkoblede LED'er eller lasere. Den kritiske størrelse er irradiansen ved fiberspidsen eller ved målvævet, ikke kildens udgangseffekt (oversigt over optogenetiske lyskilder, PMC).
Fotobioteknologi og bioprocesteknik. Lys anvendes i stigende grad som et selektivt værktøj inden for proteinkemi - f.eks. til lysdreven funktionalisering af biomolekyler - samt til belysning af fotosyntetisk aktive mikroorganismer i bioreaktorer (Berton & Holland, 2025). Den kritiske faktor her er fotonflux pr. volumenenhed og den mest mulige homogene belysning af reaktorvolumenet.
Kosmetik og solbeskyttelsesforskning. In-vitro-test af UV-filtres og fotosensibilisatorers effektivitet anvender erytem- eller fototoksicitetsvægtet bestråling. Den kritiske faktor er, hvor tæt testspektret matcher det solare UV-spektrum, da individuelle kombinationer af aktive stoffer kan være stærkt bølgelængdeselektive.
Hvordan måles irradians ved mikroplader, pulserede kilder og fiberspidser
Til meget parallel screening i mikroplader anvendes LED-arrays med individuelt adresserbare bølgelængder og positioner for at kompensere for rumlig uhomogenitet ved at kalibrere de enkelte brønde.
Til pulserede kilder som xenon-blitzlamper er en rent tidsintegrerende måling ikke tilstrækkelig, når selve pulsformen er fotobiologisk relevant; her kræves tidsopløste målemetoder.
Til termisk følsomme prøver – for eksempel levende vævsprøver eller temperaturfølsomme enzymer – kombineres kølede prøveholdere med kontinuerlig temperaturovervågning for at holde fotokemiske og termiske effekter klart adskilt.
Til in-vivo-anvendelser som fiberoptisk optogenetik eller interstitiel PDT er måling i den frie stråle grundlæggende utilstrækkelig; irradiansen skal i stedet estimeres ved den distale fiberspids eller via en valideret vævsmodel.
Hvilke størrelser skal måles eller overvåges?
Udgangspunktet for enhver måleplan er, hvilken størrelse der reelt er afgørende for det pågældende biologiske endpoint – ikke hvilket instrument der tilfældigvis er tilgængeligt. Hvis der kun anvendes en enkelt, velkarakteriseret bølgelængde, og dens virkningsspektrum-vægtning allerede er kendt, kan et bredbånds-radiometer som RMD Pro med en filterkombination tilpasset dette virkningsspektrum være tilstrækkeligt (se Valg af UV-sensorer for baggrund om sensorvalg). Så snart flere bølgelængder skal sammenlignes, kombineres eller nyevalueres, eller når en ukendt eller bredbåndet, ældende kilde er involveret, kræves en spektral måling med et spektroradiometer som SR900, fordi ingen spektral information efterfølgende kan genskabes fra en integraldialæsning.
Målinger bør altid foretages på det faktiske prøvested – ved cellelagets position, ikke i den frie stråle over beholderens låg – da svækkelse forårsaget af beholdermateriale og medium ellers systematisk undervurderes. Relevante måleusikkerheder opstår som følge af spektral mismatch mellem sensorens responsivitet og kildens faktiske spektrum, af sensorresponsivitetens vinkelafhængighed (cosinusfejl) ved ikke-parallel indfaldsvinkel, samt af kalibreringsusikkerheden for den anvendte referencestandard. Rumligt opløste målinger bliver nødvendige, så snart en prøve er større end kildens ensartet belyste areal – f.eks. multiwellplader under et enkelt LED-array. Tidsopløsning bliver relevant for pulserende eller driftende kilder, hvis output ændrer sig inden for eksponeringsperioden.
I automatiserede bestrålingsprocesser – f.eks. serieforsøg med mange prøver over uger eller måneder – er en éngangsindstilling af lampeeffekt og eksponeringstid ikke tilstrækkelig, da den faktiske irradians ændrer sig løbende på grund af lampeældning, tilsmudsning af optikken og temperaturdrift. Dosisstyret drift – som implementeret af UV-MAT dosiskontrol i et bestrålingskammer – måler løbende irradiansen med en kalibreret sensor og afslutter automatisk eksponeringen, når måldosis er nået, i stedet for at slukke efter en fast tid. Det afkobler den faktisk leverede dosis fra kildens ældning og holder forsøgsserier sammenlignelige over lange perioder.
I regulerede miljøer – f.eks. GMP-nære testlaboratorier eller akkrediterede kalibreringslaboratorier under DIN EN ISO/IEC 17025:2018-03 – er sporbar, dokumenteret logning af hver enkelt dosis desuden relevant, så batch- eller forsøgssammenligninger forbliver efterprøvelige; metrologisk sporbarhed for de anvendte sensorer sikres af det akkrediterede kalibreringslaboratorium.
I praksis registreres spektral irradians som regel med et kalibreret spektroradiometer, der dækker UV, synligt lys og, hvor det er relevant, det nære infrarøde område i én enkelt måling. Til rutinemålinger på kendte kilder anvendes radiometre med virkningsspektrum-vægtede sensorer, hvis spektrale responsivitet allerede er tilpasset et defineret virkningsspektrum. Til definerede, dosisstyrede eksponeringer af celle- og bakteriekulturer anvendes bestrålingskamre som UV-MAT med uafhængigt tilkoblelige spektrale kanaler, hvis dosiskontrol baseres på den faktisk målte – ikke blot den nominelle – irradians.
Hvad viser publiceret forskning?
Adskiller experimentelt den rent termiske effekt fra den fotokemiske effekt af en bestråling – præcis den type overlap, som længere bestrålinger ofte tilslører.
Actual isothermal effects of water-filtered infrared A-irradiation
Höhn, Annika, et al. "Actual isothermal effects of water-filtered infrared A-irradiation." Photochemistry and Photobiology 91.4 (2015): 887–894.
Viser via genekspressionsdata, at 222 nm-bestråling direkte fotolyserer reparationsenzymer, og angiver det markant højere kvanteudbytte for fotolyse af nukleobaser og aminosyrer ved 222 nm i forhold til 254 nm, som ligger til grund for dette sides gennemregnede eksempel.
Suppression of photoreactivation of E. coli by excimer far-UV light (222 nm) via damage to multiple targets
Jing, Zi-Bo, et al. "Suppression of photoreactivation of E. coli by excimer far-UV light (222 nm) via damage to multiple targets." Water Research 255 (2024): 121533.
Karakteriserer inaktiveringskinetikken for flere patogener og surrogater under 222 nm excimerbestråling, og angiver den dosis-størrelsesorden for far-UVC-desinfektion, der er citeret på denne side.
UV Inactivation of Common Pathogens and Surrogates Under 222 nm Irradiation from KrCl* Excimer Lamps
Ma, Ben, et al. "UV Inactivation of Common Pathogens and Surrogates Under 222 nm Irradiation from KrCl* Excimer Lamps." Photochemistry and Photobiology (2023).
Hvad viser publiceret forskning fra kunder?
Følgende arbejder af brugere viser bredden af feltet – fra hudreaktioner over reparationsmekanismer til lysdrevet proteinkemi.
Undersøger, hvordan UV-eksponering ændrer den inflammatoriske respons hos hudens immunceller.
Influence of UV irradiation on the skin-immune cell inflammatory response
Miceli, Rebecca, et al. "Influence of UV irradiation on the skin-immune cell inflammatory response." Research Square (2026).
Udvælger plantebaserede stofblandinger til solcremeformulering baseret på effektivitet og cytotoksicitet – behandler den beskyttende effekt som en spektralt vægtet størrelse.
Rational Selection of Phytochemical Mixtures for Sunscreen Development Based on in vitro Efficacy and Cytotoxicity Profiles
Martínez, Silvia Ximena Barrios, et al. "Rational Selection of Phytochemical Mixtures for Sunscreen Development Based on in vitro Efficacy and Cytotoxicity Profiles." Revista Brasileira de Farmacognosia 36.1 (2026).
Sammenligner bestråling og fototoksicitet i de samme cellelinjer og vurderer den forstærkende effekt af flere fotosensibilisatorer, bestrålet med et BS-04 bestrålingskammer.
Comparison of Radio- and Phototoxicity in Association with an Enhancing Effect of the Photosensitizers Psoralen, Trioxsalen and Ortho-Iodo-Hoechst33258
Tietze, Katja, et al. "Comparison of Radio- and Phototoxicity in Association with an Enhancing Effect of the Photosensitizers Psoralen, Trioxsalen and Ortho-Iodo-Hoechst33258 on FaDu, PC-3, 4T1 and B16-F10 Cells." Biomedicines 13.1 (2024): 73.
Viser i reparationsdefekte mutanter, hvor stærkt cellulær reparation bestemmer udfaldet af en UV-eksponering.
Influence of uvrA, recJ and recN gene mutations on nucleoid reorganization in UV-treated Escherichia coli cells
Estévez Castro, Carlos Felipe, Jorge Humberto Serment-Guerrero, and Jorge Luis Fuentes. "Influence of uvrA, recJ and recN gene mutations on nucleoid reorganization in UV-treated Escherichia coli cells." FEMS Microbiology Letters 365.11 (2018): fny110.
Bruger lys som et selektivt redskab i proteinkemi snarere end som en stressfaktor.
Light-induced chemistry for protein functionalisation
Berton, Cesare, and Jason P. Holland. "Light-induced chemistry for protein functionalisation." Chemical Communications (2025).
Inden for emneområderne fotobiologi, bioteknologi og medicin har Opsytec-kunder publiceret 34 værker i alt; de er opført under Publikationer af kunder – efter emne.
Teknisk baggrund og yderligere kilder
- ISO/CIE 17166:2019 – Erytem-referenceaktionsspektrum og standard erytemdosis (iso.org)
- IEC 62471 (serie) – Fotobiologisk sikkerhed for lamper og lampesystemer, inkl. IEC 62471-6:2022 (UV-lampeprodukter) og IEC 62471-7:2023 (synlig stråling) (webstore.iec.ch)
- DIN 5031-10:2018 – Optisk strålingsfysik og lysteknik, del 10: Fotobiologisk virksom stråling, størrelser, symboler og virkninger (dinmedia.de)
- ICH Q1B – Fotostabilitetstest af nye aktive stoffer og lægemidler (ema.europa.eu)
- BIPM, SI-brochuren, appendiks 3 – Enheder for fotokemiske og fotobiologiske størrelser (bipm.org)
- ISO 21348:2007 – Definitioner af spektralkategorier for solirradians (grænser for UV-A/-B/-C) (iso.org)
FAQ om fotobiologi og bioteknologi
Hvordan virker den biologiske effekt af UV-stråling?
UV-fotoner absorberes af kromoforer som DNA-baser eller proteiner og udløser fotokemiske reaktioner – for eksempel DNA-skader eller strukturelle ændringer. Effektiviteten afhænger stærkt af bølgelængden, fordi hver kromofor har sit eget absorptionsspektrum. Uden absorption sker der ingen effekt, uanset hvilken effekt der anvendes.
Hvilken bølgelængde er velegnet til fotodynamisk terapi?
Bølgelængden vælges, så den matcher absorptionsspektret for den anvendte fotosensibilisator. Blåt lys omkring 405 nm er velegnet til overfladiske læsioner, rødt lys omkring 630-635 nm er velegnet til dybere områder, fordi det penetrerer vævet stærkere. Valget er derfor et kompromis mellem absorptionseffektivitet og penetrationsdybde.
Hvilken dosis er nødvendig for mikrobiel inaktivering?
Den nødvendige dosis afhænger af bølgelængde og organisme. For 222 nm excimerkilder rapporterer undersøgelser doser omkring 10 mJ/cm² for en 4-log reduktion af mange bakterier og vira; 254 nm-kilder kræver ofte sammenlignelige værdier, dog med andre effekter på væv. Litteraturværdier gælder altid for den specifikke målegeometri og kan ikke overføres uden verifikation.
Hvad er forskellen mellem irradians og dosis?
Irradians (W/m²) beskriver den øjeblikkelige effekt pr. arealenhed; dosis (J/m²) er dens tidsintegral. Det er typisk dosis, der korrelerer med en biologisk effekt, mens irradians bestemmer, hvor hurtigt denne dosis nås. Begge størrelser bør derfor dokumenteres separat. Hvordan irradians, dosis og fluens formelt adskiller sig, er beskrevet i oversigten over radiometriske størrelser.
Hvorfor giver en identisk dosis ved forskellige bølgelængder forskellige effekter?
Fordi både fotonenergi og kvanteudbytte er bølgelængdeafhængige. Kortere bølgelængder bærer mere energi pr. foton og kan aktivere andre fotokemiske reaktionsveje, hvilket fører til markant forskellige kvanteudbytter. Et dosistal alene, uden en bølgelængdereference, er derfor ikke tilstrækkeligt til at sammenligne effekter.
Hvordan måles den faktiske irradians af en cellekultur?
Ideelt set på den faktiske prøveposition, så tæt som muligt på cellelaget, ikke i den frie stråle over beholderen. Beholdermateriale, låg og kulturmedium dæmper strålingen bølgelængdeafhængigt, nogle gange med størrelsesordener. En måling foretaget uden for disse absorbere underestimerer systematisk den faktiske dæmpning.
Hvornår er en bredbåndsmåling tilstrækkelig, og hvornår er en spektral måling nødvendig?
En bredbåndsmåling med en sensor, der matcher aktionsspektret, er tilstrækkelig, når der anvendes en enkelt, velkarakteriseret bølgelængde. Så snart flere bølgelængder skal sammenlignes, kombineres eller vurderes på ny, eller kilden er ukendt eller bredbåndet, er en spektral måling med et spektroradiometer nødvendig.
Hvilken rolle spiller temperaturen i fotobiologiske eksperimenter?
Højeffektkilder opvarmer prøven målbart, og termisk udløste reaktioner kan overlejre eller forstærke den fotokemiske effekt. En klar adskillelse kræver enten en kølet prøveholder eller en parallel isotermisk kontrolmåling. Uden temperaturkontrol kan en observeret effekt ikke sikkert tilskrives bestråling alene.
Relaterede anvendelsesområder
Fotobiologi og bioteknologi grænser op til flere nærliggende felter: medicinsk fototerapi anvender de samme fotobiologiske principper på lægeordineret behandling af patienter, farma-fotostabilitet tester lysfølsomheden af færdige produkter i stedet for en biologisk effekt, og arbejdssikkerhed og fotobiologisk sikkerhed beskæftiger sig med de samme fysiske størrelser for utilsigtet i stedet for tilsigtet eksponering. Ligeledes nærliggende er UV-desinfektion som en specialiseret inaktiveringsanvendelse, og Planter, landbrug & fødevareteknologi for den fotobiologiske effekt på plantemateriale. Den fysisk-kemiske side af excitation, sensibilisering og kvanteudbytte er beskrevet under fotokemi.
Forfatter: Dr. Mark Paravia
Dr.-Ing. Mark Paravia er direktør for Opsytec Dr. Gröbel GmbH i Ettlingen og leder det akkrediterede kalibreringslaboratorium. Efter sin forskning i pulserende xenon-excimerudladninger ved Institute of Lighting Technology på KIT er hans nuværende fokus på optisk strålingsmåleteknik. Han er vicepræsident for DIN-standardiseringsudvalget FNL 7 "Optical Radiation" og medlem af DVGW-projektgruppen om UV-desinfektion.
Usikker på, hvilken dosis der reelt når frem til et cellelag gennem låg, medium og beholdervæg
Usikker på, hvilken dosis der reelt når frem til et cellelag gennem låg, medium og beholdervæg? En solid fotobiologisk vurdering starter med en måling på det reelle prøvested – ikke i lampens frie stråle. Til defineret, dosiskontrolleret bestråling af celle- og bakteriekulturer er UV-MAT dosiskontrol velegnet; til spektral karakterisering af ukendte eller kombinerede kilder SR900 spektroradiometer; og til rutinemæssig overvågning af kendte kilder RMD Pro radiometer. Kalibrering og metrologisk sporbarhed af de anvendte sensorer sikres af det akkrediterede kalibreringslaboratorium i henhold til ISO/IEC 17025. Kontakt os vedrørende din måleopgave.
