


Fotobiologi och bioteknik: kontrollerad optisk bestrålning av celler och vävnad
Fotobiologin undersöker hur optisk strålning – från UV-C till nära infrarött – interagerar med biologiskt material: med DNA, proteiner, fotosensibilisatorer, fotoreceptorer och cellstrukturer. Bioteknik använder denna kunskap som ett medvetet verktyg – för att inaktivera mikroorganismer, kontrollera cellulära signalvägar, genomföra fotodynamisk behandling av vävnad eller driva den ljusmedierade modifieringen av biomolekyler. Den centrala tekniska utmaningen är att biologiska system inte reagerar på lampans elektriska effekt eller en generell exponeringstid, utan på den spektrala irradians som faktiskt når verkningsstället, den resulterande dosen och den våglängdsberoende effektiviteten hos enskilda fotoner. Utan spårbar optisk mätning förblir varje biologisk observation endast delvis reproducerbar.

Hur utvecklas tekniken?
Tekniskt sett är det viktigaste skiftet en förändring av vilka ljuskällor som används: bort från bredbandiga kvicksilverångslampor och mot smalbandiga UV-LED:ar och excimerkällor. Detta skifte höjer ribban för fotobiologisk karakterisering, eftersom varje ny våglängdskombination kräver sitt eget aktionsspektrum, sin egen säkerhetsprofil enligt IEC 62471 och sin egen dosimetri. Den ökande regulatoriska uppmärksamheten – till exempel uppdateringarna 2022 och 2023 av IEC 62471-6 för UV-lampprodukter och IEC 62471-7 för synligt ljus – är en direkt följd av denna ökning av antalet källtyper.
Skiftet från kvicksilverlampor till UV-LED:ar förändrar inte bara kostnad och effektivitet, utan även vilka metoder som är tillgängliga: eftersom LED-array:er ger flera våglängder samtidigt och oberoende styrbara, kan aktionsspektra nu bestämmas direkt och experimentellt genom att variera excitationsvåglängden, istället för att förlita sig på ett fåtal fasta lamplinjer. Etableringen av far-UVC-källor runt 222 nm öppnar för tillämpningar bortom klassisk desinfektion (se UV-desinfektion), eftersom deras grunda penetration i vävnad och deras distinkta fotokemi – som visas av markant högre kvantutbyten för fotolys av vissa klasser av biomolekyler – möjliggör nya säkerhetsprofiler och verkningsmekanismer (Jing et al., 2024, Water Research). På den regulatoriska sidan driver Minamatakonventionen den globala utfasningen av kvicksilverhaltiga lampor för allmän belysning till 2027; specialiserade UV-källor för forskning och desinfektion hanteras hittills genom separata undantag, men är också under ökande press att anpassa sig (Minamatakonventionen om kvicksilver – undantag). Parallellt har IEC och CIE uppdaterat sina säkerhetsstandarder för lampor och lampsystem – IEC 62471-6:2022 för UV-lampprodukter inklusive UV-LED:ar, och IEC 62471-7:2023 för källor som huvudsakligen avger synligt ljus – vilket gör fotobiologisk riskklassificering av nya LED- och laserkällor alltmer bindande (IEC Webstore).
Marknadsstorlekar, tillväxttakter och källor för detta tillämpningsområde sammanfattas på sidan Marknadsutveckling för UV-teknik.
Hur påverkar optisk strålning biologiska system
Biologiska effekter uppstår genom att fotoner absorberas av specifika molekyler, kromoforerna: nukleinsyror absorberar företrädesvis inom UV-C- och UV-B-området, aromatiska aminosyror och flaviner inom UV-A- och blåområdet, porfyriner och andra fotosensibilisatorer ofta inom det blå och röda synliga området. När en foton med lämplig energi träffar en kromofor kan den utlösa en elektronövergång som startar en fotokemisk reaktion – till exempel DNA-skada, singlet-syrebildning eller en konformationsförändring i ett fotoreceptorprotein. Sannolikheten för denna omvandling beskrivs av kvantutbytet. Eftersom absorptionsspektra är våglängdsberoende bestäms en källas fotobiologiska effektivitet inte av dess totala effekt, utan av produkten av spektral irradians och ett våglängdsberoende aktionsspektrum som anger den relativa effektiviteten för varje våglängd för en given biologisk slutpunkt (BIPM SI Brochure, Appendix 3).
Vilka tekniker och ljuskällor används?
Ett brett spektrum av källtekniker finns tillgängligt för kontrollerad bestrålning av biologiska prover, med skillnader i bandbredd, våglängdsområde, termisk belastning på provet och åldringsbeteende.
Lågtrycks-kvicksilverlampor avger nästan monokromatiskt ljus vid 253,7 nm och används traditionellt för UV-C-tillämpningar inom mikrobiologi och desinfektion. Medel- och högtrycks-kvicksilverlampor levererar ett bredbandigt linjespektrum från UV-B till synligt ljus och fungerar bland annat som en kostnadseffektiv källa för fotostabilitetstester. Xenonbågslampor simulerar solljus (D65/ID65) med ett filtrerat, kontinuerligt spektrum och är referenskällan vid farmaceutisk fotostabilitetstestning enligt ICH Q1B. Excimerlampor, till exempel baserade på kryptonklorid, avger kvasimonokromatiskt ljus – vid till exempel 222 nm – och blir allt mer relevanta utöver ren desinfektion tack vare sitt grundare penetrationsdjup i hud och ögon och sin särskilda fotokemi (Ma et al., 2023). UV- och synliga LED:ar är smalbandiga, växlar nästan omedelbart, innehåller inget kvicksilver och kan kombineras i arrayer som täcker flera våglängder, vilket avsevärt förenklar direkt registrering av aktionsspektra. Lasrar och laserdioder levererar hög effekttäthet inom ett mycket litet område och används framför allt där ljuset måste ledas via fiberoptik till en definierad plats, till exempel inom optogenetik eller fokuserad fotodynamisk behandling.
| Teknik | Egenskaper | Fördelar/Begränsningar | Typisk tillämpning |
|---|---|---|---|
| Lågtrycks-kvicksilverlampa | kvasimonokromatisk, cirka 254 nm | Hög UV-C-effektivitet, väletablerad, låg kostnad. Kvicksilverinnehåll, åldring, långsam tändning | Mikrobiologisk inaktivering |
| Medel-/högtrycks-kvicksilverlampa | bredbandigt linjespektrum, UV-B till synligt | Hög total uteffekt. Kraftig värmeutveckling, svår att filtrera | Fotostabilitetstestning, UV-härdning |
| Xenonbågslampa (filtrerad) | kontinuerligt, dagsljusliknande spektrum | Reproducerbart referensspektrum (D65/ID65). Kalibreringsarbete, hög värmebelastning | Fotostabilitetstestning, solskyddsforskning |
| Excimerlampa (t.ex. KrCl*, 222 nm) | kvasimonokromatisk, kortvågig | Grunt penetrationsdjup i vävnad, kvicksilverfri. Begränsad effekttäthet, kräver specialiserad optik | Far-UVC-forskning, ytnära inaktivering |
| UV-/synlig LED | smalbandig, flera våglängder kombinerbara | Låg termisk belastning, snabb växling, lång livslängd. Lägre uteffekt per enhet än urladdningslampor | Bestämning av aktionsspektrum, PDT, optogenetik |
| Laser/laserdiod | monokromatisk, hög effekttäthet, fiberkopplingsbar | Exakt fokusering, riktad ljusleverans. Hög kostnad, ökade säkerhetskrav | Optogenetik, fokuserad PDT |
Vilka processstorheter är avgörande?
Den fotobiologiska effekten av en exponering avgörs inte av en enda storhet, utan av samspelet mellan flera fysikaliska storheter som måste registreras separat.
Irradians (i W/m² eller mW/cm²) beskriver den strålningseffekt som träffar en yta och avgör hur snabbt en dos uppnås. Dos, eller strålningsexponering (i J/m² eller mJ/cm²), är tidsintegralen av irradiansen och är den storhet som vanligtvis korreleras med en biologisk effekt, till exempel en logreduktion eller ett erytem. Spektral irradians (W/(m²·nm)) är basstorheten när flera våglängder ska jämföras, kombineras eller viktas med ett aktionsspektrum – varje önskad viktad storhet kan härledas från den, men inte tvärtom. Effektiv, aktionsspektrumviktad irradians tar hänsyn till att inte varje watt optisk effekt är lika verkningsfull; det är endast den andel som viktas med det relevanta aktionsspektrumet som räknas. Fotonflöde (fotoner per sekund och yta, ofta angivet som µmol·m⁻²·s⁻¹) är relevant inom fotobioteknik eftersom fotokemiska reaktioner ytterst är fotonbegränsade, inte energibegränsade. Exponeringstid och provtemperatur måste registreras separat, eftersom termiska effekter kan överlagra fotokemiska effekter utan att detta framgår av dosen ensam.
Vad begränsar processen eller orsakar fel?
Ett vanligt misstag är att likställa lampans elektriska effekt med den optiska dosen på verkningsstället. Mellan lampan och målstrukturen finns avstånd, optik, eventuellt ett filter, kärlväggen, ett lock, odlingsmediet och – vid tät utsådd – cellerna själva; vart och ett av dessa lager dämpar strålningen på ett våglängdsberoende sätt. En mätning som tas ovanför provkärlet beskriver därför källan, inte den faktiska exponeringen av cellagret.
Lika vanligt är antagandet att enbart en angiven tid är tillräcklig dokumentation. Enligt Bunsen–Roscoes reciprocitetslag är produkten av irradians och tid konstant för rent fotokemiska processer; för biologiska system gäller denna reciprocitet dock bara inom ett begränsat intensitets- och tidsfönster. Reparationsmekanismer, syretillförsel och masstransport verkar på sina egna tidsskalor, så samma dos given vid hög irradians under kort tid kan ge ett annat resultat än samma dos vid låg irradians under lång tid (översikt över reciprocitetsavvikelser inom fotobiologi; studie om fotobiologiska reciprocitetsgränser). Den som jämför försöksserier bör därför ange irradians, tid och dos separat, i stället för att behandla en kortare exponering vid högre intensitet som en neutral omräkning.
En tredje, ofta underskattad punkt är att blanda ihop doser från litteraturen med direkt överförbara processvärden: en inaktiveringsdos på till exempel 10 mJ/cm² som rapporterats för en viss 222 nm-excimerkälla (Ma et al., 2023) gäller för den mätgeometri och matris som beskrivs där – att överföra den till en annan provtjocklek, ett grumligt medium eller en annan våglängd är inte tillåtet utan en ny mätning. Slutligen underskattas det ofta att termiska och fotokemiska effekter kan överlappa: en högeffekts, bredbandig källa värmer provet mätbart, och en rent termiskt utlöst reaktion kan bara skiljas från den fotokemiska effekten om båda effekterna registreras separat (Höhn et al., 2015).
Vilken inverkan har kärlmaterial, kulturmedium och geometri?
Provkärlens spektrala transmittans är starkt våglängdsberoende och är i praktiken en av de största men minst dokumenterade felkällorna. Standardlock och -plattor av polystyren kan dämpa UV-C- och UV-B-strålning med flera tiopotenser mer än UV-A eller synligt ljus, så ett experiment som endast dokumenteras som "UV-bestrålning" kan i verkligheten ha gett provet mycket olika doser beroende på vilket kärl som använts. Kulturmedierna själva innehåller UV- och blåljusabsorberande komponenter – till exempel fenolrött som pH-indikator eller riboflavin – som enligt Beer–Lamberts lag dämpar irradiansen exponentiellt med ökande skikttjocklek; redan några millimeter medium kan avsevärt minska den dos som når botten av kulturen. Vid tät cellsådd tillkommer en "inre filtereffekt", där celler nära ytan får en större andel av dosen än de som ligger djupare. I mikroplattor ger dessutom meniskbildning vid vätskeytan en inhomogen, positionsberoende irradians inom samma brunn. Där någon av dessa påverkande faktorer är okänd bör den faktiska irradiansen mätas på den avsedda provplatsen i stället för i den fria strålen.
Fotonenergi, kvantutbyte och aktionsspektra
Två storheter förklarar varför en identisk dos inte automatiskt ger en identisk effekt när våglängden ändras: fotonenergi och kvantutbyte.
Fotonenergin följer av
Ephoton = h · c / λ
med Plancks konstant h = 6,626 × 10⁻³⁴ J·s, ljusets hastighet c = 2,998 × 10⁸ m/s och våglängden λ. Kortare våglängder bär därför mer energi per foton.
Kvantutbytet Φ beskriver hur många fotokemiska händelser som sker per absorberad foton:
Φ = (antal fotokemiska händelser) / (antal absorberade fotoner)
Φ är ingen naturkonstant; det beror på den specifika molekylen, dess omgivning och ofta på själva excitationsvåglängden (IUPAC Gold Book). En förutsättning för att kunna tillämpa någon av storheterna meningsfullt är att strålningen verkligen absorberas – fotoner som inte absorberas bidrar inte till reaktionen, oavsett deras energi. Två källor med identisk irradians men olika våglängd ger vanligtvis olika fotobiologiska effekter – både eftersom målmolekylen absorberar i olika grad, och eftersom kvantutbytet i sig kan vara våglängdsberoende.
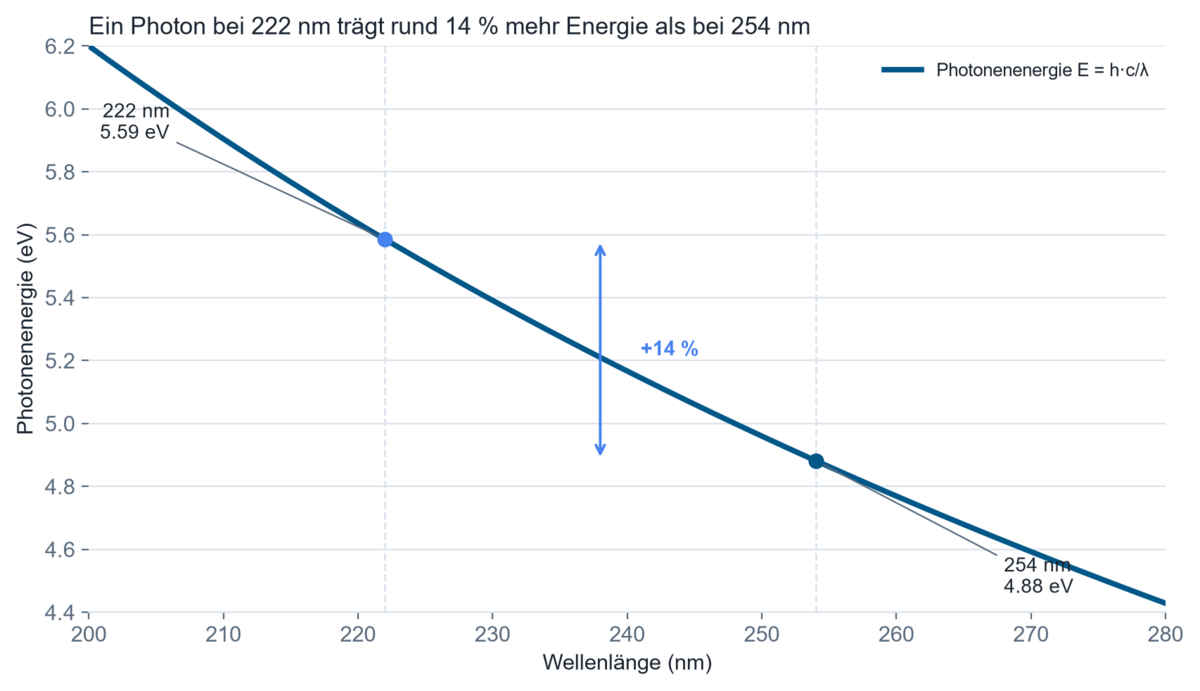
Räkneexempel: jämförelse av fotonenergi vid 222 nm och 254 nm
Fråga: UV-desinfektion och fotobiologisk forskning använder alltmer excimerkällor vid 222 nm istället för konventionella lågtryckskvicksilverlampor vid 254 nm. Hur skiljer sig fotonenergin mellan de två våglängderna, och vad innebär det för fotokemisk effektivitet?
Antaganden: monokromatisk strålning vid λ₁ = 222 nm och λ₂ = 254 nm; h = 6,626 × 10⁻³⁴ J·s; c = 2,998 × 10⁸ m/s.
Modell: Ephoton = h · c / λ
Beräkning:
E₁ = (6,626 × 10⁻³⁴ J·s × 2,998 × 10⁸ m/s) / 222 × 10⁻⁹ m ≈ 8,95 × 10⁻¹⁹ J
E₂ = (6,626 × 10⁻³⁴ J·s × 2,998 × 10⁸ m/s) / 254 × 10⁻⁹ m ≈ 7,82 × 10⁻¹⁹ J
Omräknat till elektronvolt (1 eV = 1,602 × 10⁻¹⁹ J): E₁ ≈ 5,59 eV, E₂ ≈ 4,88 eV.
Resultat: en foton vid 222 nm har ungefär 14 procent mer energi än en foton vid 254 nm.
Teknisk tolkning: denna skillnad överensstämmer med experimentella resultat som visar att kvantutbytet för fotolys av nukleobaser och aminosyror vid 222 nm är 4 till 61 gånger högre än vid 254 nm (Jing et al., 2024, Water Research). I praktiken innebär detta att en lika stor radiometrisk dos (J/cm²) vid olika våglängder inte automatiskt ger en jämförbar biologisk effekt – att endast mäta och ange irradians, utan en referens till våglängd, räcker inte för att beskriva en process reproducerbart eller för att överföra den mellan olika källor.
Var används kontrollerad optisk bestrålning?
Dermatologi och fototerapi. Smalbandig UV-B (ofta runt 311 nm) används för att behandla psoriasis och vitiligo. Den kritiska storheten här är patientens individuella minimala erytemdos (MED), som varierar från person till person och utvärderas mot erytemets aktionsspektrum enligt ISO/CIE 17166.
Fotodynamisk terapi (PDT). En fotosensibilisator exciteras av ljus vars våglängd matchar dess absorptionsband – runt 405 nm (Soret-bandet) för ytliga lesioner, eller 630–635 nm för djupare liggande. Den kritiska processtorheten är penetrationsdjupet, som är störst i det så kallade terapeutiska fönstret mellan cirka 600 och 850 nm, där spridning och absorption i vävnad är minimala (översikt över PDT-fysik, PMC).
Cell- och mikrobiologi. I forskningslaboratorier bestrålas bakterie- och cellkulturer under definierade förhållanden för att studera DNA-reparationsmekanismer, mutagenesfrekvenser eller fototoxicitet, till exempel med en BS-02 bestrålningskammare. Det kritiska kravet är reproducerbarhet av dosen vid provets faktiska position över många parallella körningar och experimentdagar (Estévez Castro et al., 2018).
Farmaceutisk fotostabilitetstestning. Enligt ICH Q1B måste aktiva substanser och färdiga läkemedelsprodukter exponeras för en definierad dos av UV- och synligt ljus (minst 200 W·h/m² UV och 1,2 miljoner lux-timmar synligt ljus) för att bedöma ljusinducerad nedbrytning. Den kritiska faktorn är den exakta spektrala matchningen av testkällan mot D65/ID65-referensspektrumet (EMA/ICH Q1B), som behandlas mer utförligt under Läkemedel & fotostabilitet.
Optogenetik och neurovetenskap. Genetiskt kodade fotoreceptorer som channelrhodopsin (aktiveras runt 473 nm) eller halorhodopsin (hämmas runt 590 nm) drivs via fiberkopplade LED:ar eller lasrar. Den kritiska storheten är irradiansen vid fiberänden eller vid målvävnaden, inte källans uteffekt (översikt över optogenetiska ljuskällor, PMC).
Fotobioteknik och bioprocessteknik. Ljus används alltmer som ett selektivt verktyg inom proteinkemi – exempelvis för ljusdriven funktionalisering av biomolekyler – samt för att belysa fotosyntetiskt aktiva mikroorganismer i bioreaktorer (Berton & Holland, 2025). Den kritiska faktorn här är fotonflöde per volymenhet och en så homogen belysning av reaktorvolymen som möjligt.
Kosmetik och solskyddsforskning. In vitro-tester av UV-filters och fotosensibilisatorers effektivitet använder erytem- eller fototoxicitetsviktad bestrålning. Den kritiska faktorn är hur nära testspektrumet matchar det solara UV-spektrumet, eftersom enskilda kombinationer av aktiva ingredienser kan vara starkt våglängdsselektiva.
Hur mäts irradians vid mikroplattor, pulsade källor och fiberspetsar
För mycket parallell screening i mikroplattor används LED-arrayer med individuellt adresserbara våglängder och positioner för att kompensera för spatial inhomogenitet genom att kalibrera enskilda brunnar.
För pulsade källor som xenonblixtlampor är en rent tidsintegrerande mätning otillräcklig när pulsformen i sig är fotobiologiskt relevant; tidsupplösta mätmetoder krävs här.
För termiskt känsliga prover – till exempel levande vävnadsprover eller temperaturkänsliga enzymer – kombineras kylda provhållare med kontinuerlig temperaturövervakning för att tydligt skilja fotokemiska effekter från termiska effekter.
För in-vivo-tillämpningar som fiberoptisk optogenetik eller interstitiell PDT är mätning i den fria strålen grundläggande otillräcklig; irradiansen måste istället uppskattas vid den distala fiberspetsen eller via en validerad vävnadsmodell.
Vilka storheter måste mätas eller övervakas?
Utgångspunkten för varje mätplan är vilken storhet som faktiskt är relevant för den biologiska slutpunkt det gäller – inte vilket instrument som råkar finnas tillgängligt. Om endast en enda, väl karakteriserad våglängd används och dess viktning enligt aktionsspektrum redan är känd, kan en bredbandsradiometer som RMD Pro med en filterkombination anpassad till detta aktionsspektrum vara tillräcklig (se Val av UV-sensorer för bakgrund om sensorval). Så snart flera våglängder ska jämföras, kombineras eller nyutvärderas, eller när en okänd eller bredbandig, åldrande källa är inblandad, krävs en spektral mätning med en spektroradiometer som SR900, eftersom ingen spektral information kan återvinnas ur en integrerad avläsning i efterhand.
Mätningar bör alltid utföras på den faktiska provplatsen – vid cellagrets position, inte i den fria strålen ovanför kärlets lock – eftersom dämpning från kärlmaterialet och mediet annars systematiskt underskattas. Relevanta mätosäkerheter uppstår genom spektral missanpassning mellan sensorns responsivitet och källans faktiska spektrum, genom sensorresponsivitetens vinkelberoende (cosinusfel) vid icke-parallell infallsvinkel, samt genom kalibreringsosäkerheten hos den referensstandard som används. Rumsligt upplösta mätningar blir nödvändiga så snart ett prov är större än källans jämnt belysta yta – till exempel multiwell-plattor under en enda LED-array. Tidsupplösning blir relevant för pulsade eller driftande källor vars uteffekt förändras under exponeringsperioden.
I automatiserade bestrålningsprocesser – till exempel serieförsök med många prover under veckor eller månader – räcker det inte med en engångsinställning av lampeffekt och exponeringstid, eftersom den faktiska irradiansen förändras kontinuerligt genom lampans åldrande, förorening av optiken och temperaturdrift. Doskontrollerad drift – så som den implementeras av UV-MAT doskontroll i en bestrålningskammare – mäter kontinuerligt irradiansen med en kalibrerad sensor och avslutar exponeringen automatiskt när måldosen uppnåtts, istället för att stänga av efter en fast tid. Detta frikopplar den faktiskt levererade dosen från källans åldrande och håller serier av försök jämförbara under långa tidsperioder.
I reglerade miljöer – till exempel GMP-närstående testlaboratorier eller ackrediterade kalibreringslaboratorier enligt DIN EN ISO/IEC 17025:2018-03 – är dessutom spårbar, dokumenterad loggning av varje enskild dos relevant, så att sats- eller experimentjämförelser förblir verifierbara i efterhand; spårbarhet för de sensorer som används tillhandahålls av det ackrediterade kalibreringslaboratoriet.
I praktiken registreras spektral irradians vanligtvis med en kalibrerad spektroradiometer som täcker UV, synligt ljus och, där relevant, det nära infraröda området i en enda mätning. För rutinmätningar på kända källor används radiometrar med aktionsspektrumviktade sensorer, vars spektrala responsivitet redan har formats för att matcha ett definierat aktionsspektrum. För definierade, doskontrollerade exponeringar av cell- och bakteriekulturer används bestrålningskammare som UV-MAT med oberoende switchbara spektrala kanaler, vars doskontroll baseras på den faktiskt uppmätta – inte enbart den nominella – irradiansen.
Vad visar publicerad forskning?
Skiljer experimentellt den rent termiska effekten från den fotokemiska effekten av en bestrålning – exakt den typ av överlappning som längre exponeringar ofta döljer.
Actual isothermal effects of water-filtered infrared A-irradiation
Höhn, Annika, et al. "Actual isothermal effects of water-filtered infrared A-irradiation." Photochemistry and Photobiology 91.4 (2015): 887–894.
Visar via genexpressionsdata att 222 nm-bestrålning direkt fotolyserar reparationsenzymer, och tillhandahåller det markant högre kvantutbytet för fotolys av nukleobaser och aminosyror vid 222 nm jämfört med 254 nm som ligger till grund för det genomräknade exemplet på denna sida.
Suppression of photoreactivation of E. coli by excimer far-UV light (222 nm) via damage to multiple targets
Jing, Zi-Bo, et al. "Suppression of photoreactivation of E. coli by excimer far-UV light (222 nm) via damage to multiple targets." Water Research 255 (2024): 121533.
Karakteriserar inaktiveringskinetiken för flera patogener och surrogat vid bestrålning med 222 nm-excimerljus, och tillhandahåller den dosstorleksordning för far-UVC-desinfektion som anges på denna sida.
UV Inactivation of Common Pathogens and Surrogates Under 222 nm Irradiation from KrCl* Excimer Lamps
Ma, Ben, et al. "UV Inactivation of Common Pathogens and Surrogates Under 222 nm Irradiation from KrCl* Excimer Lamps." Photochemistry and Photobiology (2023).
Vad visar publicerad forskning från kunder?
Följande arbeten av användare visar bredden på området – från hudreaktioner via reparationsmekanismer till ljusdriven proteinkemi.
Undersöker hur UV-exponering förändrar den inflammatoriska responsen hos hudens immunceller.
Influence of UV irradiation on the skin-immune cell inflammatory response
Miceli, Rebecca, et al. "Influence of UV irradiation on the skin-immune cell inflammatory response." Research Square (2026).
Väljer ut växtbaserade ämnesblandningar för solskyddsformulering baserat på effekt och cytotoxicitet – och behandlar skyddseffekten som en spektralt viktad storhet.
Rational Selection of Phytochemical Mixtures for Sunscreen Development Based on in vitro Efficacy and Cytotoxicity Profiles
Martínez, Silvia Ximena Barrios, et al. "Rational Selection of Phytochemical Mixtures for Sunscreen Development Based on in vitro Efficacy and Cytotoxicity Profiles." Revista Brasileira de Farmacognosia 36.1 (2026).
Jämför strålnings- och fototoxicitet i samma cellinjer och utvärderar den förstärkande effekten av flera fotosensibilisatorer, bestrålade med en BS-04-bestrålningskammare.
Comparison of Radio- and Phototoxicity in Association with an Enhancing Effect of the Photosensitizers Psoralen, Trioxsalen and Ortho-Iodo-Hoechst33258
Tietze, Katja, et al. "Comparison of Radio- and Phototoxicity in Association with an Enhancing Effect of the Photosensitizers Psoralen, Trioxsalen and Ortho-Iodo-Hoechst33258 on FaDu, PC-3, 4T1 and B16-F10 Cells." Biomedicines 13.1 (2024): 73.
Visar i reparationsdefekta mutanter hur starkt cellulär reparation avgör utfallet av en UV-exponering.
Influence of uvrA, recJ and recN gene mutations on nucleoid reorganization in UV-treated Escherichia coli cells
Estévez Castro, Carlos Felipe, Jorge Humberto Serment-Guerrero, and Jorge Luis Fuentes. "Influence of uvrA, recJ and recN gene mutations on nucleoid reorganization in UV-treated Escherichia coli cells." FEMS Microbiology Letters 365.11 (2018): fny110.
Använder ljus som ett selektivt verktyg inom proteinkemi snarare än som en stressfaktor.
Light-induced chemistry for protein functionalisation
Berton, Cesare, and Jason P. Holland. "Light-induced chemistry for protein functionalisation." Chemical Communications (2025).
Inom ämnesområdena fotobiologi, bioteknik och medicin har Opsytecs kunder publicerat totalt 34 arbeten; de listas under Publikationer från kunder – efter ämne.
Teknisk bakgrund och ytterligare källor
- ISO/CIE 17166:2019 – Referensverkningsspektrum för erytem och standarderytemdos (iso.org)
- IEC 62471 (serien) – Fotobiologisk säkerhet för lampor och lampsystem, inkl. IEC 62471-6:2022 (UV-lampprodukter) och IEC 62471-7:2023 (synlig strålning) (webstore.iec.ch)
- DIN 5031-10:2018 – Optisk strålningsfysik och belysningsteknik, del 10: Fotobiologiskt verksam strålning, storheter, symboler och effekter (dinmedia.de)
- ICH Q1B – Fotostabilitetsprövning av nya aktiva substanser och läkemedel (ema.europa.eu)
- BIPM, SI-broschyren, bilaga 3 – Enheter för fotokemiska och fotobiologiska storheter (bipm.org)
- ISO 21348:2007 – Definitioner av spektralkategorier för solens irradians (gränser för UV-A/-B/-C) (iso.org)
Vanliga frågor om fotobiologi och bioteknik
Hur fungerar den biologiska effekten av UV-strålning?
UV-fotoner absorberas av kromoforer som DNA-baser eller proteiner och utlöser fotokemiska reaktioner – till exempel DNA-skador eller strukturella förändringar. Effektiviteten beror starkt på våglängden, eftersom varje kromofor har sitt eget absorptionsspektrum. Utan absorption uppstår ingen effekt, oavsett hur hög effekten är.
Vilken våglängd lämpar sig för fotodynamisk terapi?
Våglängden väljs så att den matchar absorptionsspektrumet för den fotosensibilisator som används. Blått ljus runt 405 nm lämpar sig för ytliga lesioner, rött ljus runt 630–635 nm lämpar sig för djupare regioner eftersom det tränger in djupare i vävnad. Valet är därför en avvägning mellan absorptionseffektivitet och penetrationsdjup.
Vilken dos krävs för mikrobiell inaktivering?
Den nödvändiga dosen beror på våglängd och organism. För 222 nm-excimerkällor rapporterar studier doser på omkring 10 mJ/cm² för en 4-log-reduktion av många bakterier och virus; 254 nm-källor kräver ofta jämförbara värden, dock med andra effekter på vävnad. Litteraturvärden gäller alltid för den specifika mätgeometrin och kan inte överföras utan verifiering.
Vad är skillnaden mellan irradians och dos?
Irradians (W/m²) beskriver momentan effekt per ytenhet; dos (J/m²) är dess tidsintegral. Det är vanligtvis dosen som korrelerar med en biologisk effekt, medan irradiansen avgör hur snabbt denna dos uppnås. Båda storheterna bör därför dokumenteras separat. Hur irradians, dos och fluens skiljer sig formellt beskrivs i översikten av radiometriska storheter.
Varför ger en identisk dos vid olika våglängder olika effekter?
Eftersom både fotonenergi och kvantutbyte är våglängdsberoende. Kortare våglängder har mer energi per foton och kan aktivera andra fotokemiska reaktionsvägar, vilket leder till markant olika kvantutbyten. En dossiffra ensam, utan referens till våglängd, räcker därför inte för att jämföra effekter.
Hur mäts den faktiska irradiansen hos en cellkultur?
Idealt vid själva provplatsen, så nära cellagret som möjligt, inte i den fria strålen ovanför kärlet. Kärlmaterial, lock och odlingsmedium dämpar strålningen på ett våglängdsberoende sätt, ibland med storleksordningar. En mätning gjord utanför dessa absorbenter underskattar systematiskt den faktiska dämpningen.
När räcker en bredbandsmätning, och när behövs en spektral mätning?
En bredbandsmätning med en sensor anpassad till aktionsspektrumet räcker när en enda, väl karakteriserad våglängd används. Så snart flera våglängder ska jämföras, kombineras eller utvärderas på nytt, eller källan är okänd eller bredbandig, krävs en spektral mätning med en spektroradiometer.
Vilken roll spelar temperaturen i fotobiologiska experiment?
Källor med hög effekt värmer provet mätbart, och termiskt utlösta reaktioner kan överlagra eller förstärka den fotokemiska effekten. En ren separation kräver antingen en kyld provhållare eller en parallell isotermisk kontrollmätning. Utan temperaturkontroll kan en observerad effekt inte tillförlitligt tillskrivas enbart bestrålningen.
Relaterade tillämpningsområden
Fotobiologi och bioteknik gränsar till flera näraliggande områden: medicinsk fototerapi tillämpar samma fotobiologiska principer på läkarförskriven behandling av patienter, läkemedels fotostabilitet testar ljuskänsligheten hos färdiga produkter snarare än en biologisk effekt, och arbetsmiljö och fotobiologisk säkerhet behandlar samma fysikaliska storheter för oavsiktlig snarare än avsiktlig exponering. Även näraliggande är UV-desinfektion som en specialiserad inaktiveringstillämpning, och Växter, jordbruk & livsmedelsteknik för den fotobiologiska effekten på växtmaterial. Den fysikalisk-kemiska sidan av excitation, sensibilisering och kvantutbyte beskrivs under fotokemi.
Författare: Dr. Mark Paravia
Dr.-Ing. Mark Paravia är verkställande direktör för Opsytec Dr. Gröbel GmbH i Ettlingen och leder det ackrediterade kalibreringslaboratoriet. Efter sin forskning om pulsade xenon-excimerurladdningar vid Institute of Lighting Technology vid KIT ligger hans nuvarande fokus på optisk strålningsmätteknik. Han är vice ordförande för DIN-standardiseringskommittén FNL 7 "Optical Radiation" och medlem av DVGW:s projektgrupp för UV-desinfektion.
Osäker på vilken dos som egentligen når ett cellager genom lock, medium och kärlvägg?
Osäker på vilken dos som egentligen når ett cellager genom lock, medium och kärlvägg? En gedigen fotobiologisk bedömning börjar med en mätning på den verkliga provplatsen – inte i lampans fria stråle. För definierad, doskontrollerad bestrålning av cell- och bakteriekulturer lämpar sig UV-MAT doskontroll väl; för spektral karakterisering av okända eller kombinerade källor SR900 spektroradiometer; och för rutinmässig övervakning av kända källor RMD Pro radiometer. Kalibrering och metrologisk spårbarhet för de sensorer som används tillhandahålls av det ackrediterade kalibreringslaboratoriet enligt ISO/IEC 17025. Kontakta oss om din mätuppgift.
