


UV-bestråling i plantekultur, landbrug og fødevareteknologi
I plantekultur og fødevareteknologi er UV-stråling ikke et universalværktøj, men et indgreb med et snævert effektivt vindue: for lidt har ingen effekt, for meget skader væv eller kvalitetsegenskaber. Mere bestråling betyder ikke automatisk mere effekt – planter har responstærskler, akklimatiserer sig til gentagen eksponering og reparerer aktivt skader. En behandling bliver først reproducerbar, når bølgelængde, dosis, dosisrate, udviklingsstadie og bestrålingsgeometri dokumenteres samlet. De centrale fysiske størrelser er den spektrale irradians på det faktiske virkningssted, den resulterende dosis og – for mikrobiologiske og plantefysiologiske endpoints – den bølgelængdeafhængige biologiske effektivitet af de enkelte fotoner. Uden sporbar optisk måling forbliver enhver observation kun delvist sammenlignelig.
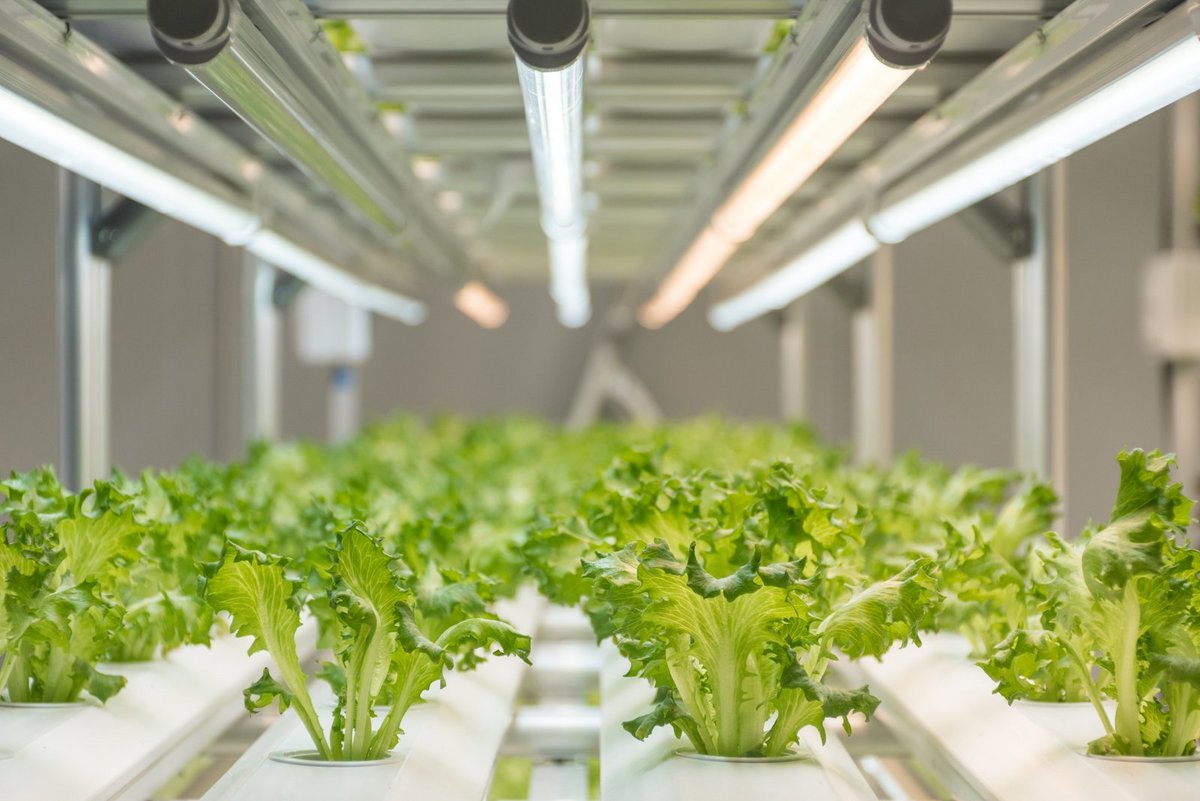
Hvordan udvikler UV-anvendelser sig inden for landbrug og fødevareteknologi?
Teknisk set betyder denne udvikling frem for alt to ting: For det første flytter lyskilden sig fra bredbånds-udladningslamper til narrowband, individuelt styrbare UV-LED-arrays, hvilket i høj grad forenkler den målrettede undersøgelse af enkelte bølgelængdebånd inden for plantefysiologi og afgrødebeskyttelse. For det andet øger det stigende antal kontrollerede kultiveringssystemer – gartnerier, vertical farms, klimakamre – behovet for reproducerbar, dokumenteret dosiskontrol, fordi UV-miljøet der er fuldstændigt bestemt af anlægget og derfor skal være metrologisk sporbart.
På det regulatoriske område har Den Europæiske Union gentagne gange udvidet markedsføringsmuligheden for UV-behandlede fødevarer: Efter den første godkendelse af UV-behandlede spisesvampe som novel food (Kommissionens gennemførelsesafgørelse (EU) 2017/2355) fulgte en udvidelse af de tilladte anvendelsesmængder (Kommissionens gennemførelsesforordning (EU) 2018/1011), og senest godkendelsen af vitamin D2-svampepulver fra UV-behandlede svampe (Kommissionens gennemførelsesforordning (EU) 2025/691). I USA regulerer 21 CFR 179.39 brugen af UV-stråling til forarbejdning og behandling af fødevarer, herunder pasteurisering af frugt- og grøntsagsjuice. Begge regelsæt forudsætter en dokumenteret, sporbar bestråling – en ren angivelse af tid eller lampeeffekt er ikke tilstrækkelig.
Skiftet fra kviksølvlamper til UV-LED'er ændrer ikke kun omkostnings- og effektivitetsstrukturer, men også de metodiske muligheder: LED-arrays leverer flere bølgelængder samtidigt og uafhængigt styrbare, så dosis-respons-forhold nu kan bestemmes direkte og eksperimentelt ved at variere excitationsbølgelængden, i stedet for kun at arbejde med få fastlagte lampelinjer. Etableringen af excimerkilder omkring 222 og 282 nm åbner nye anvendelser for selektive effekter, da deres smalle spektrale båndbredde tillader en målrettet separation af fotoskader og fotoreception. På det regulatoriske område udvider Den Europæiske Union fortsat de tilladte anvendelser af UV-behandlede fødevarer – senest med godkendelsen i 2025 af vitamin D2-svampepulver (Kommissionens gennemførelsesforordning (EU) 2025/691) – hvilket strukturelt kræver mere dokumenteret, sporbar dosismåling i fødevareproduktionen. Inden for fysisk afgrødebeskyttelse flytter fokus sig fra rent kemikaliefrie alternativer til integrerede koncepter, der kombinerer UV-B-bestråling med biologisk kontrol, for eksempel den samtidige brug af rovmider og natlig UV-B-anvendelse mod spindemider.
Markedsstørrelser, vækstrater og kilder for dette anvendelsesområde er sammenfattet på siden Markedsudvikling for UV-teknologi.
Hvordan virker UV-stråling på plante- og mikrobielt materiale?
UV-stråling virker gennem to parallelle mekanismer: fotoskade og reguleret fotoreception. Fotoskade opstår, når UV-B- eller UV-C-fotoner absorberes direkte af nukleinsyrer, aromatiske aminosyrer eller andre kromoforer og derved ændrer kovalente bindinger, for eksempel ved dannelse af cyclobutan-pyrimidin-dimerer i DNA. Fotoreception er derimod en kontrolleret signalrespons: højere planter besidder en specifik UV-B-fotoreceptor, UVR8 (UV RESISTANCE LOCUS 8), hvis kromofor er dannet af flere tryptofanrester – primært Trp285. Absorption af en UV-B-foton udløser den næsten øjeblikkelige monomerisering af UVR8-homodimeren; monomeren binder COP1, den centrale regulator af lyssignalering, og igangsætter derved en genekspressionskaskade, der blandt andet opregulerer flavonoidsyntese og DNA-reparationsveje (Rizzini et al., 2011, Science). Ved mikrobiel inaktivering i forbindelse med posthøst-hygiejne dominerer derimod direkte fotokemisk DNA-skade på målorganismen, uden en reguleret reparationsvej som UVR8. Hvilken mekanisme der dominerer, afhænger af bølgelængde, målorganisme og dosis: UV-A virker primært via oxidativ stress som en sekundær effekt, UV-B via begge mekanismer samtidig, UV-C næsten udelukkende via direkte fotoskade.
Hvilke teknologier og lyskilder anvendes?
Der findes en række kildeteknologier til kontrolleret UV-bestråling af planter, svampe og fødevarer, som adskiller sig i bandbredde, bølgelængdeområde, pulsdrift og ældningsforhold.
Lavtryks-kviksilverlamper udsender næsten monokromatisk lys ved 253,7 nm og anvendes traditionelt til UV-C-applikationer inden for desinfektion efter høst. Mellemtryks- og højtryks-kviksilverlamper afgiver et bredbåndet linjespektrum fra UV-B til det synlige område og er velegnede til storarealbestråling i forsøgskamre og drivhuse. UV-LED'er er narrowband, kobler næsten øjeblikkeligt, er kviksilverfrie og kan kombineres i arrays, der dækker flere bølgelængder, hvilket i høj grad forenkler registreringen af dosis-respons-forhold og gør dem til den foretrukne kilde til UV-priming-forsøg og vertical-farming-applikationer. Excimerlamper, for eksempel baseret på krypton-chlorid (222 nm) eller xenon-bromid (282 nm), udsender kvasi-monokromatisk lys med lave spredningstab og anvendes i stigende grad til selektiv forskning i aktionsspektre. Xenon-blitzlamper (pulsed light) afgiver et bredbåndet, pulseret spektrum med en høj UV-C-andel ved meget korte eksponeringstider og lav termisk belastning af prøven; de anvendes primært til overfladedekontaminering af emballage og ved aftapning af drikkevarer (Claranor; Fraunhofer IVV).
| Teknologi | Karakteristika | Fordele | Begrænsninger | Typisk anvendelse |
|---|---|---|---|---|
| Lavtryks-kviksilverlampe | Kvasi-monokromatisk, 253,7 nm | Høj UV-C-effektivitet, etableret, lav pris | Kviksilverindhold, ældning, forsinket tænding | Desinfektion efter høst, overfladedekontaminering |
| Mellemtryks-/højtryks-kviksilverlampe | Bredbåndet linjespektrum, UV-B til Vis | Høj samlet effekt, store arealer kan bestråles | Stor varmeudvikling, svær at filtrere | Bestråling i drivhuse, forsøgskamre |
| UV-LED (UV-A/UV-B/UV-C) | Narrowband, flere bølgelængder kombinerbare | Lav termisk belastning, hurtig kobling, dæmpbar, kviksilverfri | Lavere enkeltenhedseffekt end gasudladningslamper, bølgelængdeafhængig temperaturdrift | UV-priming, undersøgelser af aktionsspektre, vertical farming |
| Excimerlampe (f.eks. KrCl*, 222 nm; XeBr*, 282 nm) | Kvasi-monokromatisk, kort bølgelængde | Defineret enkeltbølgelængde, lave spredningstab | Begrænset effektdensitet, særlig optik/strømforsyning | Selektiv forskning i aktionsspektre, overfladedekontaminering |
| Xenon-blitzlampe (pulsed light) | Bredbåndet, pulseret, høj UV-C-andel | Høj spidseffekt ved kort eksponeringstid | Pulsformen påvirker resultatet, kalibreringsindsats | Dekontaminering af emballage og overflader |
Hvilke procesparametre er afgørende?
Effekten af en UV-behandling bestemmes ikke af en enkelt størrelse, men af samspillet mellem flere fysiske parametre, som skal registreres separat.
Irradians (i W/m² eller mW/cm²) beskriver den strålingseffekt, der rammer en overflade, og bestemmer, hvor hurtigt en dosis nås. Dosis, eller stråleeksponering (i J/m² eller mJ/cm²), er tidsintegralet af irradiansen og den størrelse, der normalt korreleres med en biologisk effekt, såsom en primingrespons, log-reduktion af en mikroorganisme eller vævsskade. Spektral irradians (W/(m²·nm)) er udgangsstørrelsen, når flere bølgelængder skal sammenlignes eller kombineres, da enhver vægtet størrelse kan udledes heraf, men ikke omvendt. Dosisraten har betydning uafhængigt af den samlede dosis, fordi biologisk reparation, stimulusopfattelse og transportprocesser forløber på deres egne tidsskalaer og derfor kan reagere forskelligt på den samme samlede værdi, afhængigt af om den afgives kortvarigt og intenst eller over en lang periode med lav intensitet. Fotosyntetisk fotonfluxtæthed (PPFD, µmol·m⁻²·s⁻¹) beskriver den synlige del af bestrålingen og har betydning, fordi vækstbetingelser som temperatur, næringstilførsel og baggrundsbelysning er medbestemmende for den observerede UV-respons. Udviklingsstadie og bestrålingsgeometri – afstand, indfaldsvinkel, ensartethed over det behandlede område – fuldender listen over størrelser, der skal registreres separat for at sikre reproducerbar dokumentation.
For det fotosyntetisk aktive område konverterer dette værktøj spektrale data til fotonfluxtæthed. Udledningen og den simple faktor-pr.-bølgelængde-metode er beskrevet i beregning af fotonfluxtætheden PPFD.
Beregneren kører udelukkende i din browser — der overføres ingen data.
Hvad begrænser processen eller forårsager fejl?
En almindelig fejl er at ligestille lampens elektriske effekt med den optiske dosis på virkningsstedet. Mellem lampen og målstrukturen ligger afstand, muligvis en beskyttelsesskærm, blad- eller frugtoverfladen og – i tætte bevoksninger – nabo-plantedele; hvert af disse lag svækker strålingen på en bølgelængdeafhængig måde. En måling ved lampepositionen beskriver derfor kilden, ikke den faktiske eksponering af målet.
Lige så almindelig er antagelsen om, at angivelse af tid alene er tilstrækkelig dokumentation. Ifølge Bunsen-Roscoes reciprocitetslov er produktet af irradians og tid konstant for rent fotokemiske processer; for biologiske systemer gælder denne reciprocitet dog kun inden for et begrænset intensitets- og tidsvindue, hvis grænser varierer efter endpoint og organisme. For UV-B-induceret mortalitet hos spindemiden Tetranychus urticae er reciprocitet blevet eksperimentelt bekræftet over et bredt intensitetsområde (Murata & Osakabe, 2013, Journal of Insect Physiology) – loven er derfor ikke fundamentalt ugyldig for biologiske endpoints, men skal kontrolleres separat for hver organisme og bølgelængde. Uafhængigt heraf kan reparationsmekanismer, iltgenopfyldning og massetransport forløbe på deres egne tidsskalaer, så den samme dosis givet ved høj irradians over kort tid kan give et andet resultat end den samme dosis ved lav irradians over lang tid. Enhver, der sammenligner forsøgsserier, bør derfor angive irradians, tid og dosis separat, i stedet for at behandle en kortere eksponering ved højere intensitet som en neutral omregning.
Et tredje, ofte underkendt punkt er fotoreaktivering: mange organismer kan enzymatisk reparere UV-induceret DNA-skade ved efterfølgende eksponering for UV-A eller blåt lys. Denne effekt forklarer, hvorfor tærskeldoser fastlagt under laboratorieforhold ikke kan overføres uden verifikation til feltet eller til et drivhus med anden baggrundsbelysning – et punkt, der udforskes kvantitativt i det uddybede eksempel nedenfor. En fjerde, systematisk underkendt effekt er produktgeometri: uregelmæssigt formede afgrøder modtager kun den fulde dosis på eksponerede overflader, mens fordybninger, stilkfastgørelser og kontaktflader forbliver skyggede; rotation, en defineret afstand og bestråling fra flere sider er derfor nødvendige dele af procesudviklingen. For flydende produkter er det derimod transmissionen, der styrer resultatet: klare produkter kan bestråles igennem, mens uklare eller stærkt absorberende medier ofte begrænser den brugbare lagtykkelse til få millimeter.
Hvilken indflydelse har bladstruktur, pigmenter og bestrålingsgeometri?
Bladepidermis er det mest effektive naturlige UV-filter hos højerestående planter. I en undersøgelse af 25 plantearter under naturligt sollys var epidermal transmittans for UV-stråling (280–400 nm) under 5 % for mere end halvdelen af arterne; UV-absorberende flavonoider og relaterede pigmenter i epidermis stod for 20 til 57 % af dæmpningen i 16 af de undersøgte arter (Robberecht & Caldwell, 1978, Oecologia). Denne filtereffekt er ikke konstant, men er selv UV-induceret: via UVR8-signalvejen øger en forudgående UV-B-eksponering flavonoidsyntesen og sænker dermed den epidermale transmittans for efterfølgende bestråling – en plantebestand reagerer derfor ikke lineært på gentagne UV-doser, men med en selvforstærkende afskærmningseffekt. For forsøgsdesign og praktisk anvendelse betyder det, at en dosis, der er kalibreret på ét blad eller én bestand, har en tendens til at miste effektivitet ved fortsat behandling, medmindre den justeres igen.
På bevoksningsniveau tilføjer kronearkitekturen endnu en faktor: bladvinkel, bladtæthed og vækstretning afgør, hvor stor en andel af bladarealet der modtager direkte bestråling, og hvor stor en andel der forbliver skygget – i tætte bevoksninger kan denne effekt være større end selve den underliggende spektrale virkningsfunktion. Ved efterhøstbehandling og fødevarer gør et strukturelt beslægtet, men teknisk forskelligt forhold sig gældende for produktgeometri og transmission gennem emballage eller væske, som beskrevet i det foregående afsnit. I begge tilfælde er konsekvensen den samme: en irradians angivet ved kilden siger kun lidt om den dosis, der reelt er effektiv på det biologisk relevante sted, uden kendskab til den dæmpning, der forårsages af væv, pigmenter eller geometri.
Reciprocitetsloven og dens begrænsninger i plante- og skadedyrsbiologi
Bunsen–Roscoe-reciprocitetsloven beskriver det simpleste forhold mellem irradians og eksponeringstid for fotokemiske processer:
H = E · t
Her er H dosis (J/m²), E irradiansen (W/m²) og t eksponeringstiden (s). Loven forudsætter, at den fotokemiske reaktion kun afhænger af det kumulative fotonantal og ikke forstyrres af hverken reparationsprocesser eller mætningseffekter inden for det betragtede intensitets- og tidsvindue. For UV-B-induceret mortalitet hos spindemiden Tetranychus urticae er denne reciprocitet bekræftet inden for et irradiansområde fra 0,19 til 0,58 W/m² – og for æg helt ned til 0,014 W/m² – idet mortalitetssandsynligheden korrelerer lineært med den kumulative UV-B-irradians, uafhængigt af den anvendte intensitet (Murata & Osakabe, 2013, Journal of Insect Physiology). Inden for det testede område kan en måldosis nås gennem forskellige kombinationer af irradians og tid uden at ændre effekten.
Modellen har dog en vigtig begrænsning, som ikke må forveksles med en overtrædelse af reciprociteten: den beskriver kun forholdet mellem irradians og tid inden for en given eksponeringssituation, ikke overførbarheden af en tærskeldosis fastlagt i laboratoriet til andre lysforhold.
Regneeksempel: hvorfor er den effektive UV-B-dosis mod spindemideæg forskellig i laboratorium og felt?
Spørgsmål. I det samme studie blev der bestemt en LD50 på 0,58 kJ/m² for spindemideæg under en kunstig UV-B-lampe. En tidligere feltundersøgelse med solar UV-B-stråling havde givet en LD50 på omkring 50 kJ/m² for samme endepunkt. Hvor stor er forskellen, og hvorfor forekommer den på trods af gyldig reciprocitet?
1. Forudsætninger. LD50(laboratorium, kunstig UV-B-lampe) = 0,58 kJ/m²; LD50(felt, solar UV-B-stråling) ≈ 50 kJ/m² (Murata & Osakabe, 2013).
2. Model. Forhold mellem de to doser; der er ikke brug for en reciprocitetsformel, da begge værdier allerede er integrerede doser.
3. Beregning. 50 kJ/m² ÷ 0,58 kJ/m² ≈ 86.
4. Resultat. Under solstråling var der behov for en cirka 86 gange højere kumulativ dosis for at opnå samme dødelighed som under den kunstige UV-B-lampe i laboratoriet.
5. Teknisk tolkning. Forfatterne tilskriver denne forskel fotoreaktivering – en reparationsmekanisme, der aktiveres af ledsagende UV-A og synligt lys, og som er aktiv i felten, men ikke ved isoleret bestråling i laboratoriet. Eksemplet viser, at reciprocitet inden for én lyskilde ikke siger noget om overførbarheden af en dosis-respons-relation til et spektrum med anderledes ledsagende stråling. For praktisk relevante anvendelser – f.eks. UV-B-plantebeskyttelse i et drivhus – skal tærskeldoser derfor bestemmes under de faktiske bestrålingsforhold, inklusive baggrundslys.

Hvor bruges UV-bestråling inden for planteavl, landbrug og fødevareteknologi?
Plantefysiologi og grundforskning: UV-B og UV-A udløser via UVR8 signalveje, der styrer pigmentdannelse, antioxidantsystemer og syntesen af sekundære metabolitter. Det afgørende her er den separate dokumentation af bølgelængde, irradians og udviklingsstadie, da samme dosis virker forskelligt ved forskellige vækststadier. For prydplanter og afgrøder, hvor kvaliteten drives af sekundære metabolitter – f.eks. cannabisblomster – viser sammenligninger af flere UV-spektre og intensiteter på samme stand, at effekterne af bølgelængde og intensitet kan adskilles (Huebner et al., 2024, Frontiers in Plant Science).
Kontrollerede dyrkningssystemer (vertical farming, vækstkamre, drivhuse): i fuldt kontrollerede lysmiljøer bruges UV i stigende grad som en planlægningsbar vækst- og kvalitetsfaktor snarere end blot et biprodukt af naturligt sollys. Det kritiske krav er samtidig registrering af UV-indhold og synlig, fotosyntetisk aktiv stråling, da begge dele tilsammen bestemmer den observerede plantereaktion.
UV-priming: en kontrolleret UV-B- eller UV-C-forbehandling kan øge den senere stresstolerance over for tørke eller patogener, f.eks. hos stressfølsomme rissåninger. Det kritiske er reproducerbarhed over uger, sæsoner eller år, da ældende lamper uden dosiskontrolleret bestråling eller regelmæssige radiometriske kontroller systematisk afgiver en anden dosis end ved forsøgets start.
Fysisk skadedyrsbekæmpelse (integreret skadedyrsbekæmpelse): UV-B bruges målrettet til at undertrykke skadedyr og svampesygdomme uden kemiske midler. Anvendelse af UV-B om natten undertrykker meldug på agurk, jordbær og andre afgrøder mere effektivt end anvendelse om dagen, fordi svampens fotoreaktivering ved dagslys ikke sker i mørkefasen (Suthaparan et al., 2016, Plant Disease). Parallelt kan UV-B kombineret med lysreflekterende folier fysisk bekæmpe toplettet spindemide i drivhusdyrkede jordbær (Tanaka et al., 2016, Journal of Economic Entomology). I begge tilfælde er tidspunktet for anvendelsen – ikke kun dosis – afgørende, da fotoreaktiveringseffekter afhænger af tidspunkt på døgnet og bølgelængde.
Efterhøstbehandling og fødevaresikkerhed: UV-C reducerer overflademikroorganismer og patogene svampe på frugt, grøntsager og råvarer som kakao og kaffe. En probabilistisk dosisangivelse i stedet for en fast behandlingstid gør det muligt målrettet at inaktivere Colletotrichum og samtidig beskytte produktkvaliteten (Ahn et al., 2026, Food Control). Den kritiske procesparameter er produktgeometri, da uregelmæssigt formede produkter kun modtager den fulde dosis på eksponerede overflader.
Pasteurisering af drikkevarer og juice: i USA er UV-bestråling godkendt i henhold til 21 CFR 179.39 til blandt andet reduktion af humanpatogene mikroorganismer i frugt- og grøntsagsjuice. Kritisk her er væskens transmission: klare juicer kan bestråles i tynde film, mens uklare produkter begrænser den anvendelige lagtykkelse.
Produktion af spisesvampe: UV-bestråling øger målrettet indholdet af vitamin D2 i spisesvampe som Agaricus bisporus; i EU er dette godkendt som en ny fødevare med definerede anvendelsesmængder (Kommissionens gennemførelsesforordning (EU) 2018/1011; Kommissionens gennemførelsesforordning (EU) 2025/691). Sammenligning af kunstig og naturlig bestråling er kritisk, da begge kan give forskellige forhold mellem vitamin D2 og uønskede biprodukter som agaritin (Urbain, Valverde & Jakobsen, 2016, Plant Foods for Human Nutrition).
Emballage og aftapning: pulserede xenon-flashlys-systemer dekontaminerer emballageoverflader og beholdere uden kemikalier eller vand, især til kølede eller sure produkter (Fraunhofer IVV). Kritisk her er ensartet belysning af tredimensionelle emballagegeometrier, da skyggelagte områder kan forblive ubehandlede.
Hvordan bestråles uregelmæssige produkter, uklare juicer og tætte plantebevoksninger?
For uregelmæssigt formede høstede produkter – rodgrøntsager, svampe med en stok ved basen, frugt med fordybninger – nås den fulde dosis kun på de eksponerede overflader; rotation, en defineret afstand og bestråling fra flere sider er nødvendige dele af processen. For flydende produkter som juice eller flydende ekstrakter er det transmissionen, der bestemmer den brugbare lagtykkelse: klare medier kan bestråles i lag på flere centimeters tykkelse, mens uklare eller pigmenterede væsker ofte begrænser dette til få millimeter, hvilket kræver strømningsbaserede reaktorgeometrier med en tynd flydende film. Til fysisk skadedyrsbekæmpelse i drivhuset anvendes lysreflekterende plader for at øge bestrålingen af bladenes underside, hvor mange skadedyr foretrækker at opholde sig. For tætte plantebevoksninger i vertikale gårde, hvor de enkelte bladlag skygger for hinanden, er bestrålingssystemer med flere sider eller omsluttende bestråling nødvendige, da ensidig belysning fra oven kun repræsentativt dækker det øverste bladlag.
Hvilke størrelser skal måles eller overvåges?
Udgangspunktet for enhver måleplan er, hvilken størrelse der faktisk er relevant for det givne biologiske eller mikrobiologiske endepunkt – valget af den rette UV-sensor følger af bølgelængdeområdet og anvendelsen. Hvis der anvendes en enkelt, veldefineret bølgelængde, kan et bredbånds-radiometer med en passende sensor være tilstrækkeligt til rutineovervågning. Så snart flere bølgelængder skal sammenlignes eller kombineres – for eksempel ved sammenligning af UV-indhold og synligt lys i vækstkamre og drivhuse, hvilket er standardtilfældet i planteforskning – kræves en spektral måling af UV-indhold og synligt lys med et spektroradiometer, da spektral information ikke kan genskabes fra en integral aflæsning.
Målinger skal generelt foretages på det faktiske målsted – bladoverfladen, frugtoverfladen eller produktoverfladen – ikke ved lampens position, da absorption i væv, emballage eller væske ellers ville blive systematisk underestimeret. Relevante måleusikkerheder skyldes spektral mismatch mellem sensorens respons og kildens spektrum, den vinkelafhængige sensorrespons ved ikke-parallelt indfaldende lys, samt kalibreringsusikkerheder ved referencestandarden. For store eller rumligt komplekse prøver er en enkelt målePosition ikke tilstrækkelig; et gitter over det behandlede areal, hvorfra maksimum-, minimums- og middelværdier kan aflæses, er den eneste måde at vise, om alle prøver i en batch er blevet behandlet sammenligneligt. Tidsopløste målinger bliver nødvendige, når lamper ældes over uger eller måneder, eller deres spektrum driver – en effekt, der er mere udtalt i gasudladningslamper end i UV-LED'er, hvor den i stedet erstattes af irradians- og temperaturafhængighed af bølgelængden.
I automatiserede postharvest- og emballagelinjer er en engangsindstilling af lampeeffekt og eksponeringstid ikke tilstrækkelig, fordi den faktiske irradians løbende ændres på grund af lampeældning, tilsmudsning af reflektoren og temperaturdrift. Dosiskontrolleret drift måler kontinuerligt irradiansen med en kalibreret sensor og afslutter automatisk eksponeringen, når måldosis er nået, i stedet for at slukke efter en fast tid. Ved probabilistisk dosisspecifikation i postharvest-desinfektion – for eksempel inaktivering af Colletotrichum i kakao- og kaffeforarbejdning – defineres måldosis ikke som en fast værdi, men som en statistisk sikret nedre grænse, der garanterer en defineret inaktiveringssandsynlighed på trods af varierende produktgeometri (Ahn et al., 2026).
For fysisk plantebeskyttelse i drivhuset viser forskning i meldugbekæmpelse tydeligt, at anvendelsesfrekvens, timing og automatisering af UV-B-anvendelse sammen bestemmer effektiviteten (Suthaparan et al., 2016, Plant Disease): automatiserede, tidsstyrede natlige anvendelser kræver pålidelig sensortilbagemelding, da en identisk dosis anvendt om dagen kan vise reduceret effekt på grund af konkurrerende fotoreaktivering. I regulerede miljøer – for eksempel ved produktion af UV-behandlede fødevarer under de ovennævnte EU- og FDA-regler – er desuden sporbar, dokumenteret logning af hver enkelt dosis relevant, for at gøre batch-sammenligninger efterfølgende verificerbare.
I praksis er bestrålingskamre med UV-MAT-dosiskontrol og valgbart spektralområde velegnede til at skabe definerede eksponeringer til plante-, svampe- og fødevareforsøg; dosiskontrolleret bestråling afkobler forsøgsresultatet fra lampeældning og gør forsøgsserier sammenlignelige over lange perioder. Til rutinemålinger er et radiometer til rutinemæssig UV-overvågning med en passende sensor velegnet; hvor UV-indhold og synligt lys skal registreres samtidig, er et spektroradiometer det rette værktøj.
Hvad viser den publicerede forskning?
Tre grundlæggende undersøgelser danner det fysiske og biologiske grundlag for udsagnene på denne side, uafhængigt af specifikke Opsytec-kundeapplikationer:
Rizzini, L., et al. (2011). Perception of UV-B by the Arabidopsis UVR8 protein. Science 332(6025): 103–106. Grundlaget for den molekylære mekanisme for UVR8-fotoreceptoren, som beskrives på denne side.
Robberecht, R., Caldwell, M. M. (1978). Leaf epidermal transmittance of ultraviolet radiation and its implications for plant sensitivity to ultraviolet-radiation induced injury. Oecologia 32: 277–287. Grundlaget for tallene om epidermal UV-transmittans i afsnittet om bladstruktur og pigmenter.
Murata, Y., Osakabe, M. (2013). The Bunsen–Roscoe reciprocity law in ultraviolet-B-induced mortality of the two-spotted spider mite Tetranychus urticae. Journal of Insect Physiology 59: 241–247. Bekræfter reciprocitetsloven for et biologisk endepunkt over et bredt intensitetsområde og giver forskellen mellem laboratorie- og feltdosis, som ligger til grund for det udregnede eksempel på denne side.
Hvad viser publiceret forskning fra kunder?
Ud over den generelle videnskabelige litteratur bruger kunder Opsytec-instrumenter direkte inden for plantevidenskab, landbrug og fødevareteknologi:
Huebner, D. S., et al. (2024). Influence of different UV spectra and intensities on yield and quality of cannabis inflorescences. Frontiers in Plant Science 15: 1480876. DOI: 10.3389/fpls.2024.1480876. Sammenligner flere UV-spektre og -intensiteter på samme stand med spektroradiometeret UVpad.
Jazayeri, S. M., et al. (2024). Comparison of the Effects of UV-C Light in the Form of Flash or Continuous Exposure: A Transcriptomic Analysis on Arabidopsis thaliana L. International Journal of Molecular Sciences 25(24): 13718. DOI: 10.3390/ijms252413718. Optaget med UVpad, hvor pulseret og kontinuerlig UV-C-bestråling sammenlignes på transkriptomniveau.
Ahn, E., et al. (2026). From minutes to bounds: A probabilistic UV-C control and a shape-only morphological fingerprint for postharvest Colletotrichum inactivation in cacao and coffee processing. Food Control 183: 111956. DOI: 10.1016/j.foodcont.2025.111956. Bruger RMD Pro til dosiskontrolleret desinfektion efter høst.
Thomas, T. T. D., Dinakar, C., Puthur, J. T. (2020). Effect of UV-B priming on the abiotic stress tolerance of stress-sensitive rice seedlings: Priming imprints and cross-tolerance. Plant Physiology and Biochemistry 147: 21–30. DOI: 10.1016/j.plaphy.2019.12.001. Undersøger UV-B-priming i stress-følsomme rissåplanter.
Urbain, P., Valverde, J., Jakobsen, J. (2016). Impact on vitamin D2, vitamin D4 and agaritine in Agaricus bisporus mushrooms after artificial and natural solar UV light exposure. Plant Foods for Human Nutrition 71(3): 314–321. DOI: 10.1007/s11130-016-0552-8. Sammenligner kunstig og naturlig solbestråling til dannelse af D-vitamin i spisesvampe.
Yderligere arbejde fra plantevidenskab, landbrug og fødevareteknologi – i alt 18 kundepublikationer på tværs af disse to emneområder – findes i oversigten Kundepublikationer om plantevidenskab, landbrug og fødevareteknologi.
Teknisk baggrund og yderligere læsning
- Rizzini, L., et al. (2011): Perception of UV-B by the Arabidopsis UVR8 protein. Science 332(6025): 103–106. DOI 10.1126/science.1200660.
- Robberecht, R., Caldwell, M. M. (1978): Leaf epidermal transmittance of ultraviolet radiation and its implications for plant sensitivity to ultraviolet-radiation induced injury. Oecologia 32: 277–287. DOI 10.1007/BF00345107.
- Murata, Y., Osakabe, M. (2013): The Bunsen–Roscoe reciprocity law in ultraviolet-B-induced mortality of the two-spotted spider mite Tetranychus urticae. Journal of Insect Physiology 59: 241–247. DOI 10.1016/j.jinsphys.2012.11.008.
- Commission Implementing Decision (EU) 2017/2355 om godkendelse af UV-behandlede spisesvampe som en ny fødevare. eur-lex.europa.eu
- Commission Implementing Regulation (EU) 2018/1011 om udvidelse af de tilladte anvendelsesniveauer for UV-lysbehandlede svampe. eur-lex.europa.eu
- Commission Implementing Regulation (EU) 2025/691 om godkendelse af vitamin D2-svampepulver fra UV-behandlede svampe. eur-lex.europa.eu
- 21 CFR 179.39 – Ultraviolet stråling til forarbejdning og behandling af fødevarer (FDA/eCFR). ecfr.gov
- ISO 21348:2007 – Definitioner af solar irradians' spektrale kategorier (UV-A/-B/-C-grænser). iso.org
FAQ om UV-bestråling i plantekultur, landbrug og fødevareteknologi
Hvordan fungerer UV-priming i planter?
Ved priming udsættes en plante for en kontrolleret UV-B- eller UV-C-dosis, der aktiverer signalveje via UVR8-fotoreceptoren og opregulerer reparations- og beskyttelsesmekanismer. En senere stress fra tørke eller patogener kan derved reduceres. Effekten afhænger af dosis og udviklingsstadie og kan ikke generaliseres til andre arter.
Hvilken bølgelængde er effektiv til vitamin D-dannelse i spisesvampe?
UV-B-stråling (280-315 nm) er effektiv til at omdanne ergosterol til vitamin D2. Både kunstige UV-B-kilder og naturligt sollys øger indholdet af vitamin D2, men de adskiller sig i forholdet til uønskede biprodukter som agaritin. Den specifikke tilladte mængde er reguleret i EU som novel food.
Hvilken dosis er nødvendig til desinfektion efter høst?
Den nødvendige dosis afhænger af organismen og produktet og angives i stigende grad probabilistisk snarere end som en fast værdi for at sikre en defineret inaktiveringssandsynlighed på trods af varierende produktgeometri. Litteraturværdier gælder for den specifikke målegeometri, der er anvendt, og kan ikke overføres direkte uden fornyet verifikation.
Hvad er forskellen mellem irradians og dosis?
Irradians (W/m²) beskriver den øjeblikkelige effekt pr. arealenhed, dosis (J/m²) dens integral over tid. I plantekultur er denne forskel særligt vigtig: den samme daglige dosis virker forskelligt, når den påføres som en kort, intens puls eller spredes over flere timer, fordi plantens reparations- og beskyttelsesmekanismer kræver tid. Irradians, eksponeringstid og dosis skal derfor angives separat i testprotokollen. Symboler, enheder og forskellen fra fluens er angivet under radiometriske størrelser.
Hvorfor slår en UV-behandling fejl trods tilstrækkelig lampeeffekt?
Ofte når den elektrisk angivne lampeeffekt ikke det biologisk relevante mål uden dæmpning: afstand, væv, emballage eller væske absorberer strålingen bølgelængdeafhængigt, ofte med flere størrelsesordener. Desuden kan fotoreaktivering fra ledsagende lys eller et ugunstigt anvendelsestidspunkt reducere den forventede effekt. Hvorfor en effektangivelse principielt ikke er en målestørrelse, forklares under radiometriske størrelser.
Hvordan måles den faktiske UV-dosis i en plantekultur?
Ideelt set direkte ved blad- eller frugtoverfladen, ikke ved lampepositionen, da væv og geometri dæmper strålingen bølgelængdeafhængigt. For store eller ujævne bevoksninger er en gittermåling med maksimum-, minimum- og middelværdier nødvendig for at sikre sammenlignelighed inden for en batch.
Hvilken teknologi er velegnet til fysisk skadedyrsbekæmpelse med UV-B?
Bredbånds-UV-B-kilder kombineret med lysreflekterende ark bruges til at bekæmpe spindemider, mens tidsindstillede natlige anvendelser hæmmer meldug mere effektivt end anvendelser i dagtimerne. Effektiviteten afhænger stærkt af anvendelsestidspunktet, da fotoreaktivering fra dagslys reducerer effekten af doser, der påføres i dagtimerne.
Hvilke faktorer påvirker reproducerbarheden af UV-forsøg på planter?
Ud over bølgelængde, dosis og dosishastighed er udviklingsstadie, temperatur, vandforsyning, næringsstoffer og baggrundssynligt lys alle påvirkende faktorer. Ældende lamper ændrer også irradians og til tider spektret, så en konstant apparatindstilling over længere forsøgsserier ikke garanterer en konstant dosis.
Relaterede anvendelsesområder
Disse anvendelser er teknisk tæt forbundet med tilstødende områder inden for optisk stråleteknik – fotobiologi og bioteknologi: kontrolleret optisk bestråling (et fælles grundlag i fotoreceptorer og dosis-respons-forhold), UV-desinfektion: driftsprincip og målte størrelser (sammenlignelige krav til dosiskontrolleret hygiejne efter høst) og arbejdsmiljø og fotobiologisk sikkerhed ved optisk stråling (relevant for personalebeskyttelse ved automatiserede UV-B-anlæg til afgrødebeskyttelse).
Forfatter: Dr. Mark Paravia
Dr.-Ing. Mark Paravia er direktør for Opsytec Dr. Gröbel GmbH i Ettlingen og leder det akkrediterede kalibreringslaboratorium. Efter sin forskning i pulserende xenon-excimer-udladninger ved Institute of Lighting Technology på KIT er hans nuværende fokus optisk strålingsmåleteknik. Han er næstformand for DIN-standardiseringsudvalget FNL 7 "Optical Radiation" og medlem af DVGW's projektgruppe om UV-desinfektion.
Når den reelle UV-dosis frem til bladet, frugten eller produktet?
Er du i tvivl om, hvilken UV-dosis der faktisk når frem til bladoverfladen, frugtvævet eller cellelaget – i stedet for blot at blive målt ved lampen? En pålidelig vurdering begynder med en måling på det reelle virkningssted og en dokumenteret, dosiskontrolleret bestråling, der forbliver reproducerbar uafhængigt af lampens ældning. Til forsøgsrækker på planter og svampe er UV-MAT velegnet, til rutinekontrol RMD Pro, og til spektral adskillelse af UV-andelen fra synligt lys SR900. Kontakt os om din måle- eller procesopgave.
